 |
INTRODUCCIÓN
Bioformulado en polvo humectable con conidias de Trichoderma asperellum: Desarrollo y eficacia contra Rhizoctonia solani en plántulas de algodón
Wettable powder bioformulation with Trichoderma asperellum conidia: Development and efficacy against Rhizoctonia solani in cotton seedlings
Yuri H. Calle-Cheje1*; Leonor Mattos Calderón2
1 Universidad Católica Sedes Sapientiae, Campus Santa María, Av. Real N° 809, Distrito de Santa María, Huaura. Lima, Perú.
2 Universidad Nacional Agraria La Molina, Av. La Molina s/n, distrito de La Molina. Lima, Perú.
* Autor corresponsal: yuricalle@hotmail.com (Y. H. Calle-Cheje).
ORCID de los autores:
Y. H. Calle-Cheje: https://orcid.org/0000-0001-5802-1101 L. Mattos Calderón: https://orcid.org/0000-0003-4773-8582
RESUMEN
El incremento en la demanda de productos biológicos para la agricultura contrasta con las limitaciones de las formulaciones convencionales de Trichoderma, caracterizadas por su corta vida útil, lo que dificulta su almacenamiento, transporte y comercialización. Frente a este vacío tecnológico, el objetivo del estudio fue obtener e identificar aislados de Trichoderma y desarrollar un bioformulado en polvo humectable a base de caolín y bentonita, evaluar su eficacia para el control de Rhizoctonia solani en plántulas de algodón bajo condiciones de maceta. Aislados obtenidos desde suelos de la costa central del Perú, se caracterizaron morfológica y molecularmente mediante regiones ITS, identificándose dos como Trichoderma asperellum (TCal y TCh2). El antagonismo in vitro frente a R. solani se evaluó mediante placas precolonizadas y filtrados. T. asperellum TCal se multiplicó en sustrato de maíz, alcanzando 1,47 × 10⁹ conidias g⁻¹. Formulados con 12 % de conidios mantuvieron más de 1,18 × 10⁹ conidias g⁻¹ tras 90 días de almacenamiento a 19 - 24 °C y 1, 21 x 109 a 4 °C, todos con viabilidad superior al 95%. En invernadero, estas formulaciones redujeron significativamente la severidad de la enfermedad causada por R. solani, con eficacias de control entre 57,5% y 58,3%. Estas formulaciones facilitarán el transporte, almacenamiento y uso comercial de Trichoderma como agente de control biológico.
Palabras clave: control biológico; formulación; caolín; bentonita; vida útil.
ABSTRACT
The increasing demand for biological products in agriculture contrasts with the limitations of conventional Trichoderma formulations, characterized by their short shelf life, which hinders their storage, transport, and marketing. Faced with this technological gap, the objective of this study was to obtain and identify Trichoderma isolates and develop a wettable powder bioformulation based on kaolin and bentonite, evaluating its efficacy in controlling Rhizoctonia solani in cotton seedlings under pot conditions. Isolates obtained from soils on the central coast of Peru were morphologically and molecularly characterized using ITS regions, identifying two as Trichoderma asperellum (TCal and TCh2). In vitro antagonism against R. solani was evaluated using pre-colonized plates and filtrates. T. asperellum TCal multiplied on a maize substrate, reaching 1.47 × 10⁹ conidia g⁻¹. Formulations containing 12% conidia maintained more than 1.18 × 10⁹ conidia g⁻¹ after 90 days of storage at 19–24 °C and 1.21 × 10⁹ at 4 °C, all with viability exceeding 95%. In greenhouses, these formulations significantly reduced the severity of disease caused by R. solani, with control efficiencies between 57.5% and 58.3%. These formulations will facilitate the transport, storage, and commercial use of Trichoderma as a biological control agent.
Keywords: biological control; formulation; kaolin; bentonite; shelf life.
Recibido: 25-01-2026.
Aceptado: 18-08-2026.
|
INTRODUCCIÓN
Trichoderma es un género de hongo ampliamente distribuido a nivel mundial, presente en diversos ecosistemas y zonas climáticas, desde regiones templadas y tropicales hasta ambientes extremos como la Antártida y la tundra (Gams & Bissett, 1998). Coloniza principalmente madera en descomposición y residuos vegetales, y con frecuencia actúa como endófito en plantas leñosas, estableciendo interacciones benéficas con sus hospederos (Ávila-Oviedo et al., 2026). Es el sexto género de hongo más citado en las publicaciones de la base de datos de Web of Science por su impacto en estudios de Micología y significado económico (Bhunjun et al., 2024).
Trichoderma ha sido identificado como uno de los antagonistas más eficaces contra Rhizoctonia solani, un patógeno de suelo ampliamente distribuido que ocasiona pérdidas importantes en diversos cultivos (Abo-Elyousr et al., 2026; Vashisht et al., 2026; Halifu et al., 2020; Harries et al., 2026). En algodón, R. solani, particularmente el grupo AG-4, provoca damping-off en pre y post emergencia, reduciendo el establecimiento de plántulas y el rendimiento potencial (Heflish, 2020). En Estados Unidos, las enfermedades tempranas asociadas a este patógeno redujeron el rendimiento entre 2 y 3 % anual (Goulart et al., 2021), aunque su impacto aumenta bajo condiciones ambientales favorables y prácticas de manejo deficientes (Ahumada, 2026). En otros cultivos como alfalfa y soya, las pérdidas pueden alcanzar entre 20% y 60% (Akber & Fang, 2024; Sahu et al., 2024).
En el Perú, el cultivo de algodón tuvo una participación importante en el Producto Bruto Interno (PBI); sin embargo, su importancia económica ha disminuido progresivamente. Entre 2007 y 2018, su contribución al PBI pasó de 3,8% a 0,5%, debido al incremento de las importaciones de fibra, la volatilidad de los precios internacionales, la desventaja competitiva frente a países que utilizan semillas transgénicas y el uso progresivo de fibras sintéticas (MINAGRI, 2019; Khan et al., 2020).
En este contexto, R. solani representa una limitante adicional para el cultivo, ya que reduce la población de plantas cuando la humedad del suelo favorece su desarrollo (Ajayi-Oyetunde & Bradley, 2018), lo que conduce al uso frecuente de fungicidas químicos. Aunque en el Perú no existen estimaciones precisas de las pérdidas ocasionadas por este patógeno, los daños son particularmente severos en suelos de textura pesada, donde disminuye significativamente el número de plantas establecidas.
En el Perú, la regulación sobre el uso de plaguicidas químicos se aplica de manera más estricta en cultivos de agroexportación que en aquellos destinados al mercado interno, lo que, junto con la inadecuada disposición de envases, puede comprometer la sostenibilidad agrícola (Sandoval et al., 2023). Asimismo, la exposición crónica a plaguicidas representa un riesgo para la salud humana, especialmente en trabajadores agrícolas y poblaciones rurales (Honles et al., 2026). En este contexto, el empleo de formulados a base de Trichoderma representa una alternativa viable y ambientalmente segura para reducir la dependencia de plaguicidas sintéticos y mitigar sus efectos negativos, manteniendo al mismo tiempo la eficacia en el manejo de R. solani y otros patógenos del suelo.
En las últimas décadas, la demanda de agentes de biocontrol basados en Trichoderma ha aumentado significativamente, impulsando la necesidad de garantizar su calidad, estabilidad y eficacia mediante la identificación molecular de cepas nativas (Cai & Druzhinina, 2021), la estandarización de los procesos de producción y el desarrollo de formulaciones adaptadas al entorno de aplicación. Entre estas, los polvos humectables destacan por su facilidad de manejo y aplicación (Kumar et al., 2023). Sin embargo, en diversas regiones del Perú aún predominan sistemas artesanales de producción basados en sustratos sólidos, como arroz y otros cereales, que, aunque son económicos y de fácil implementación (Arévalo et al., 2017), presentan limitaciones en estabilidad, vida útil, transporte y comercialización, reduciendo la eficacia del agente de control biológico.
El desarrollo de formulaciones sólidas requiere la deshidratación y cosecha de propágulos, principalmente conidias (Hamrouni et al., 2026), y su incorporación en materiales portadores inertes, como caolín, vermiculita, bentonita, talco etc. (Kumar et al., 2023; Martínez et al., 2023). En Perú, estas arcillas están ampliamente disponibles como subproductos de la actividad minera (Faustino et al., 2023; Mamani et al., 2022). Sin embargo, no existen estudios sobre formulaciones en polvo humectable con materiales locales, y uno de los principales desafíos tecnológicos es minimizar la pérdida de viabilidad de los propágulos durante el almacenamiento, con una vida útil deseable de 8 a 12 meses (Kumar et al., 2014).
Hasta julio de 2021, el Servicio Nacional de Sanidad Agraria (SENASA) registró 130 bioplaguicidas comerciales en el país, de los cuales Trichoderma representó el 16 %, ocupando el segundo lugar después de Bacillus thuringiensis. Aunque su uso en la agricultura de exportación ha aumentado, esta situación evidencia una brecha tecnológica entre la creciente demanda de bioinsumos y la disponibilidad de formulaciones estables y eficaces de Trichoderma adaptadas a las condiciones locales.
En este contexto, el objetivo del presente estudio fue desarrollar formulaciones tipo polvo humectable a partir de aislados peruanos de Trichoderma asperellum, empleando caolín y bentonita como portadores, evaluar su vida útil bajo diferentes condiciones de almacenamiento y determinar su eficacia en el control de Rhizoctonia solani en plántulas de algodón en condiciones de invernadero.
METODOLOGÍA
Obtención de Rhizoctonia solani y prueba de patogenicidad
Rhizoctonia solani se aisló a partir de plántulas de algodón de 15 días con síntomas de cancros y lesiones hundidas en la base del tallo, recolectadas en Alto Larán, Chincha, Perú (13°26′41″ S; 76°06′47″ W). Fragmentos de 0,5–1,0 cm de tejido necrosado se desinfestaron con hipoclorito de sodio (300 ppm), después de enjuagar y secar se transfirieron en placas Petri con medio PDA suplementado con cloranfenicol (50 ppm). Las placas se incubaron a 25 °C durante 72 h. Los aislados se evaluaron preliminarmente por sus características macroscópicas de crecimiento y posteriormente se describieron sus características morfológicas de hifa según los criterios de Parmeter & Whitney (1970) y Ajayi-Oyetunde & Bradley (2018).
Para la prueba de patogenicidad se utilizó una mezcla 1:1 de arena de río y suelo agrícola de textura franco arenosa, desinfectada con formol al 2 % durante 7 días. Después de la ventilación el sustrato se transfirió a bolsas plásticas negras de 4,5 kg, en las que se sembraron cinco semillas de algodón cv. Tanguis. A los 12 días, en la base del tallo se inocularon el patógeno, removiendo el sustrato entre 2 - 5 cm de profundidad e incorporando el contenido de una placa Petri con R. solani de 7 días por maceta. Las plantas se mantuvieron entre 21 - 25 °C, con 70–90 % de humedad relativa y riego inter diario a capacidad de campo.
Obtención de aislados de Trichoderma y descripción
Se recolectaron 12 muestras de suelo rizosférico de plantas de algodón (Gossypium barbadense L.), a una profundidad de 10–20 cm, en campos de cultivo ubicados en Chincha, Ica (13°29′35,5″ S, 76°09′49,0″ W), y Cañete, Lima (13°05′19,3″ S, 76°23′15,6″ W), Perú. A partir de estas muestras se aislaron cepas de Trichoderma.
En el laboratorio, las muestras se suspendieron en agua destilada estéril y se prepararon diluciones seriadas hasta 10⁻³. Posteriormente, se inocularon 20 μL de la dilución 10⁻³ en placas de Petri que contenían medio selectivo modificado para Trichoderma (TSM) modificado, según Elad et al. (1981), sin pentacloro nitrobenceno ni dimetil amino bencenosulfónico. Se adicionaron 50 ppm de cloranfenicol, 50 ppm de captan (Captan 50®) y 250 ppm de metalaxil (Fitoklin®) por litro de medio estéril.
Los aislados de Trichoderma obtenidos de suelos de Cañete (TCal, TCa2) y Chincha (TChl, TCh2) se cultivaron en medio PDA. Tras 7 días, se identificaron hasta el nivel de género basado en características morfológicas de color, olor, aspecto de la colonia, tasa de crecimiento, conformación del conidióforo, forma de células conidiógenas y conidias, utilizando los criterios morfológicos descritos por Gams & Bissett (1998).
Cribado in vitro de Trichoderma
a. Velocidad de crecimiento en PDA
Los aislados obtenidos fueron multiplicados en medio PDA. Se evaluó la velocidad de crecimiento micelial mediante el diámetro de la colonia cada 12 horas. En la evaluación se incluyeron especies conocidas T. viride, T. harzianum y T. virens, proporcionadas por el Servicio Nacional de Sanidad Agraria del Perú (SENASA) a través del Programa Nacional de Control Biológico.
b. Selección mediante placas pre colonizadas
Se empleó el método descrito por Leiva et al. (2020). Para ello, R. solani se cultivó en medio PDA en placas Petri de 9 cm de diámetro, tras 7 días, se inoculó con Trichoderma de 7 días crecida en PDA, colocando un trozo de 0,5 x 2,5 cm en un extremo de la placa, sobre la colonia del patógeno, de manera invertida para asegurar el contacto entre las hifas del antagonista y el patógeno. Se realizaron 5 réplicas por aislado. Las placas se incubaron a 25 °C. Se midió la longitud de crecimiento micelial de Trichoderma extrayendo rodajas sucesivas con un sacabocado de 6 mm de diámetro desde el extremo opuesto al inóculo. La longitud de crecimiento del antagonista y la inhibición de R. solani se calcularon multiplicando el diámetro por el número de trozos, y se determinó la inhibición del patógeno mediante la fórmula: PI = (CT x 100) / N; donde PI es porcentaje de inhibición, CT es crecimiento de Trichoderma, N es número de muestras o rodajas por cada réplica.
c. Selección por inhibición micelial con filtrados de Trichoderma
La evaluación se realizó mediante la técnica de cultivo envenenado con filtrados de Trichoderma (You et al., 2016). El antagonista se cultivó en caldo papa dextrosa (PD) estéril (250 g de papa blanca y 20 g de dextrosa L⁻¹) contenido en matraces, inoculados con dos discos de PDA (2 × 2 cm) con micelio de 5 días. Los cultivos se incubaron a 21–25 °C, con agitación a 150 rpm durante 7 días. La biomasa se separó mediante filtración (Millipore, 0,45 µm) y centrifugación a 4000 rpm por 10 min. El sobrenadante se calentó en baño maría a 60 °C durante 2 h y se incorporó al medio PDA hasta una concentración final de 40 % (v/v). R. solani se inoculó en placas Petri suplementadas con el filtrado mediante discos miceliales; el control consistió en PDA sin filtrado. Las placas se incubaron a 25 °C durante 5 días. El diámetro de la colonia se registró a las 48, 72 y 96 h, y el porcentaje de inhibición se calculó como: Inhibición (%) = [(A − B)/A] × 100, donde A corresponde al crecimiento en el control y B al crecimiento en cada tratamiento.
Identificación molecular de Trichoderma
Los aislados monoespóricos de Trichoderma (TCal y TCh2) se cultivaron en PDA durante 4 días a 24 °C. El ADNr de la región ITS se extrajo con el kit Extracta Plus DNA 50 RXN (Quantbio Inc., EE. UU.) y se amplificó por PCR usando los primers ITS1 e ITS4 (White et al., 1990), con temperaturas de anillamiento de 61 y 55 °C, respectivamente. Los amplicones se secuenciaron por el método Sanger (Macrogen, EE. UU.).
Posteriormente, los electroferogramas se editaron y las secuencias se alinearon en MEGA (MUSCLE) junto con secuencias de referencia. Las secuencias se contrastaron con la base de datos NCBI mediante BLAST, considerando porcentaje de cobertura, identidad y E-valor como criterios de identifi-cación. El análisis filogenético se realizó en IQ-TREE v.2 mediante máxima verosimilitud con 1000 réplicas, y el árbol se editó en iTOL v.6.
Multiplicación de Trichoderma en sustrato sólido
El aislado identificado como Trichoderma asperellum TCal se multiplicó en maíz amarillo partido (Dekalb®), hidratado con 250 mL de agua destilada estéril por 750 g, según la metodología de Castillo-Arévalo et al. (2025) con modificaciones. Para obtener el inóculo Trichoderma primero se multiplicó en placa Petri con PDA durante 5 días, a la cual se añadió 20 mL de agua destilada estéril, obteniéndose 15 mL de suspensión de conidias con una concentración de 2 x 10⁸ conidias/mL. Esta suspensión se añadió a un frasco conteniendo 500 mL de solución nutritiva (melaza de caña de azúcar al 3% y levadura de cerveza al 0,5%), seguidamente se incubó en agitación a 150 rpm por cuatro días a 19-24 °C. Finalmente 50 mL del inóculo obtenido se incorporó en cada bolsa con sustratos, incubándose a 25 °C durante 10 días para su desarrollo.
Formulación de T. asperellum en polvo humectable (PH)
Los conidios de T. asperellum TCal, obtenidos desde sustrato sólido de maíz amarillo, se utilizaron para formular cuatro prototipos PH (correspondiente a una formulación tipo polvo mojable), para ello, se mezclaron con caolinita (Caolín COMACSA®), bentonita sódica y almidón de papa, en las proporciones indicadas en la Tabla 1. La caolinita y la bentonita sódica se esterilizaron mediante calor seco a 90 °C durante 4 h, mientras que el almidón de papa se esterilizó de forma fraccionada en dos ciclos de 2 h a 70 °C.
Tabla 1
Componentes de los formulados polvos mojables de Trichoderma asperellum
|
Materia inerte |
Conidios de Trichoderma (%) |
|
|
Tipo de Portador |
Cantidad (%) |
|
|
Caolinita |
89,0 |
6,0 |
|
Caolinita |
83,0 |
12,0 |
|
Bentonita |
89,0 |
6,0 |
|
Bentonita |
83,0 |
12,0 |
|
Almidón de papa |
5,0 |
- |
Para cosechar las conidias desde el sustrato de maíz amarillo partido, éstas se deshidrataron con un deshumidificador Miray DM-208 hasta alcanzar una humedad relativa del 25% a 15 °C durante 4 días, posteriormente las conidias se extrajeron mediante agitación rotatoria a 250 rpm y adaptado con tamices de 300 y 150 mesh, a continuación se homogenizaron con las arcillas mediante una mezcladora rotatoria a 60 rpm durante 60 minutos, los formulados se almacenaron en frascos de polietileno de alta densidad durante 90 días, a 4 °C y otro grupo a 19-24 °C. Para la evaluación de la estabilidad (concentración, viabilidad, pH, humec-tabilidad y suspendibilidad) de los formulados obtenidos, se almacenaron cinco frascos por cada prototipo, los cuales fueron evaluados cada 30 días.
Concentración y viabilidad de conidias en el formulado PH
La concentración de conidios se determinó en una suspensión de conidias a una dilución 1:1000 v/v obtenida mediante diluciones seriadas, a partir de 10 g de polvo mojable mezcladas en 90 mL agua destilada y estéril con Tween 80 al 0,1%. Para el conteo de conidias se utilizó la cámara de Neubauer. Para calcular la viabilidad de conidios se agregó 0,.2 mL de la dilución en una placa Petri con PDA, contando el número de conidias con formación de tubo germinativo a las 18 horas de incubación a 24 °C, expresado en porcentaje.
pH, humectabilidad y suspendibilidad
El pH se determinó en una solución homogenizada resultante de mezclar 10 gramos de PH en 100 mL de agua destilada con un equipo Analizador Multiparámetro JP SELECTA MP-2006. La humec-tabilidad se evaluó según lo establecido en CIPAC MT 53.3 y la suspendibilidad de acuerdo con CIPAC MT 15.1, para formulaciones tipo polvo mojable.
Bioensayo con los formulados PH
Para conocer la eficacia de control de “Chupadera fungosa” causada por R. solani, se aplicó suspen-siones del PH en plantas de algodón Gossypium barbadense Cv. Tanguis inoculadas con el patógeno y crecidas en macetas de bolsa negra con mezcla de suelo agrícola de textura franco arenoso y arena de río en una proporción 1:1, v/v, desinfestada con formol al 2%. Las dosis de aplicación se detallan en la Tabla 2. La severidad de daño por R. solani se evaluó empleando la escala de grados propuesta por Goulart (2018). Con los datos de grados se determinó la severidad de daño utilizando la fórmula de Towsend & Heuberger (1943).
Tabla 2
Tratamientos con formulados de T. asperellum TCal en el control de R. solani en plantas de algodón
|
Código de Tratamiento |
Ingrediente activo |
N° conidias /maceta |
|
|
(%) |
Conidios/g |
||
|
C12 C06 B12 B06 CQ Ctrl1 Ctrl2 |
12,0 06,0 12,0 06,0 0,1 - - |
1,21x10⁹ y 0,62x10⁹ 1,23x10⁹ 0,62x10⁹ - - - |
1,08x10⁸ 0,55x10⁸ 1,10 x 10⁸ 0,55x10⁸ - - - |
Nota: y concentración del producto formulado. C = caolín; B = bentonita; los números (12 y 6) indican la concentración (%) de conidias. CQ = benomilo (0,1%); Ctrl1 = control inoculado con R. solani; Ctrl2 = testigo absoluto (sin patógeno ni tratamiento).
Propagación e inoculación de R. solani
El patógeno se propagó en sustrato cáscara de arroz (CA) suplementada con una solución nutritiva PD. Se utilizaron 150 mL de esta solución y 500 g de cáscara por bolsa polipropileno; luego de esterilizar se incorporó un trozo (2 x 2 cm) de medio PDA con hifas de R. solani y se incubó a 24 °C durante 10 días.
El sustrato de las macetas utilizado tuvo las mismas características que el utilizado en la prueba de patogenicidad. Las semillas de algodón fueron desinfectadas en una solución de NaClO al 1% durante 5 minutos, luego se enjuagaron dos veces con agua destilada. Se sembraron 5 semillas por maceta. Las condiciones ambientales de bioensayo fueron 19 – 24 °C, 75% - 92% de humedad relativa. En plantas de 15 días, se inoculó 10 gramos de CA colonizado con R. solani en la zona del cuello de plantas, cubriéndose adicionalmente 2 cm de espesor con CA libre de patógeno para mantener la humedad del suelo. Las macetas se regaron manualmente manteniendo la humedad del sustrato en estado capacidad de campo.
Aplicación del formulado Trichoderma
De los prototipos PH se obtuvieron suspensiones de conidias (Tabla 2). Se mezclaron 1,5 g de PH en 500 mL de agua destilada. Después de homoge-neizar, se asperjaron 30 mL de la mezcla en la zona de la base de tallo de cada maceta utilizando una atomizadora Truper® de 1 L de capacidad 3 días después de la inoculación del patógeno. Se utilizó benomilo (Farmate®, Farmagro) como referencia.
Diseño estadístico
Los datos de crecimiento e inhibición micelial y severidad se analizaron bajo un diseño comple-tamente al azar (DCA), con cinco réplicas por tratamiento y una placa Petri como unidad experimental. Para la evaluación de concentración de conidias, viabilidad, pH, suspendibilidad y humectabilidad del PH se utilizó un DCA con arreglo factorial. Previamente, los datos se sometieron a la prueba de normalidad de Shapiro–Wilk y homogeneidad de varianzas (p = 0,05). El análisis de varianza y la prueba post hoc de Tukey se realizaron con el software Minitab 19.
RESULTADOS Y DISCUSIÓN
Aislamiento de Rhizoctonia solani y prueba de patogenicidad
Desde tallos de plántulas de algodón afectadas por “chupadera fungosa” en el cuello, se aisló el hongo R. solani en medio PDA. Al principio la colonia mostró micelio claro, que luego se tornó marrón con el tiempo y creció rápidamente, de 1 a 2 cm por día. Bajo el microscopio, se observaron características morfológicas específicas: hifas con septos bien desarrollados, diámetro de 8 a 11 µm, constricción en los puntos de ramificación y en forma de “T”, sin formación de conidias. Estas características coinciden con las descritas por Parmeter & Whitney (1970) y Ajayi-Oyetunde & Bradley (2018), y se confirma la identificación como R. solani para el aislado obtenido desde plántulas de algodón provenientes de Chincha Perú. En la Figura 1 se presenta la imagen de hifas y la cancrosis.
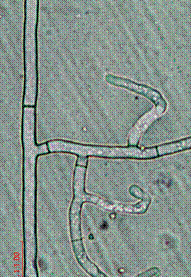
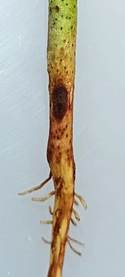
Figura 1. Hifas de R. solani aisladas de plántulas de algodón; a la derecha, cancro en el talluelo.
Rhizoctonia solani, aislada de talluelos de algodón procedentes de Chincha Perú, mostró ser patogénica en invernadero, causando síntomas similares a los observados en el campo. A partir del cuarto día después de la inoculación aparecieron los primeros síntomas, algunas plantas murieron debido a un cancro severo en el cuello. Según la escala de Goulart (2018), el daño fue de moderado a severo, con lesiones hundidas de color marrón y una coloración rojo púrpura en la base del tallo, coincidiendo con descripciones de Ajayi-Oyetunde & Bradley (2018). De los tallos con cancrosis se re aisló el mismo patógeno.
Las enzimas poligalacturonasa (PG), pectin metil esterasa (PME) y celulasas son factores deter-minantes en la degradación de las pectinas y celulosa de la pared celular vegetal, ocasionando necrosis en los tejidos afectados. En R. solani, se ha demostrado que la expresión de los genes que codifican estas enzimas se induce fuertemente durante las primeras etapas de infección, favoreciendo la colonización y el avance de la pudrición radicular (Majumdar et al., 2022). Este mecanismo explica la cancrosis observada en el cuello de plántulas de algodón, donde la acción enzimática debilita las paredes celulares y facilita la invasión del patógeno.
Aislamiento e identificación molecular de Trichoderma
Se aislaron 4 cepas de Trichoderma en medio TSM, todas las colonias mostraron color verde. Los aislados de Cañete fueron denominados TCal y TCa2, los de Chincha como TChl y TCh2. TCal tuvo crecimiento rápido, micelio efuso, color verde oscuro y olor a coco, TCa2 creció más lentamente, tenía una colonia compacta, color verde olivo y produjo pigmentación amarilla en PDA. TChl presentó color verde oscuro, micelio efuso, esporulación densa y olor a coco, TCh2 creció más rápido que TChl, también color verde oscuro y olor a coco. Los aislados TCal y TCh2 formaron rápidamente colonias algodonosas con abundante esporulación, cubriendo placas Petri de 9 cm en 4-5 días. Los cuatro aislados presentaron conidióforo con eje principal y ramificación primaria y secundaria, fiálides en forma de botella, simples, o dispuestas en pares, verticiladas, conidias unicelulares color ligeramente verde, ovoide, pared lisa, formando paquetes alrededor de las fiálides. Los cuatro aislados pertenecen al género Trichoderma de acuerdo con las características descritas por Gams & Bissett (1998).
De los aislados TCal y TCh2, (con buen efecto antagónico in vitro contra R. solani), se extrajeron ADN de la región ITS, la amplificación por PCR de las secuencias mostró fragmentos de aproximadamente 500 pb; se informa que Trichoderma tiene entre 300 a 600 pb en la región ITS (Cai & Druzhinina, 2021). Las secuencias de estas dos cepas alineadas en el BLAST del NCBI revelaron que ambos aislados tienen un 100% de identidad con T. asperellum. Para TCal, la cobertura fue del 99% con la accesión MT529873, para TCh2 fue del 100% con la accesión MT126695 del GenBank.
El análisis filogenético (Figura 2) mostró que TCal y TCh2 están estrechamente relacionados con otras cepas de T. asperellum, como las accesiones MT529873 y KF425754, GU198317 y GU198310, formando un grupo monofilético con un nodo de bootstrap del 97 %. Esto confirma que los aislados de Cañete (TCal) y Chincha (TCh2) son similares a T. asperellum.
El género Trichoderma se caracteriza por su rápido crecimiento de color verde, y muchas especies del clado Trichoderma tienen olor a coco, por lo que son fáciles de reconocer (Mendoza-Mendoza et al., 2024). Los estudios filogenéticos recientes en Trichoderma han demostrado que la región ITS, aunque ampliamente utilizada como marcador molecular, puede presentar una resolución limitada para discriminar especies estrechamente relacionadas. Por ello, se recomienda el empleo complementario de regiones codificantes como el factor de elongación de la traducción 1-α (tef1) y la subunidad 2 de la ARN polimerasa II (rpb2), que proporcionan mayor capacidad de resolución en la identificación y delimitación de especies (Cai et al., 2022; Jin et al., 2026).
Velocidad de crecimiento del micelio de aislados de Trichoderma
Los aislados TCal y TCh2, junto a T. viride, T. harzianum y T. virens fueron evaluados en PDA a 25°C a intervalos de 18, 36, 48, 69 y 87 horas. El aislado TCal mostró el crecimiento más rápido, seguido por TCh2, cubriendo la placa Petri de 9 cm en 87 horas, T. harzianum lo hizo después de 90 horas. El aislado TCa2 mostró un crecimiento más lento, cubriendo la placa en 5 a 6 días. En la Figura 3 se compara la tasa de crecimiento micelial. Los aislados TCal y TCh2 (T. asperellum) mostraron la mayor velocidad de crecimiento, con 1,2 cm/día, superando a T. harzianum que creció a 1,18 cm/día. Miguel-Ferrer et al. (2021) reportan que T. harzianum y T. koningiopsis crecieron a 1,32 y 1,23 cm/día, respectivamente. Este crecimiento rápido es una característica deseable en controladores biológicos.
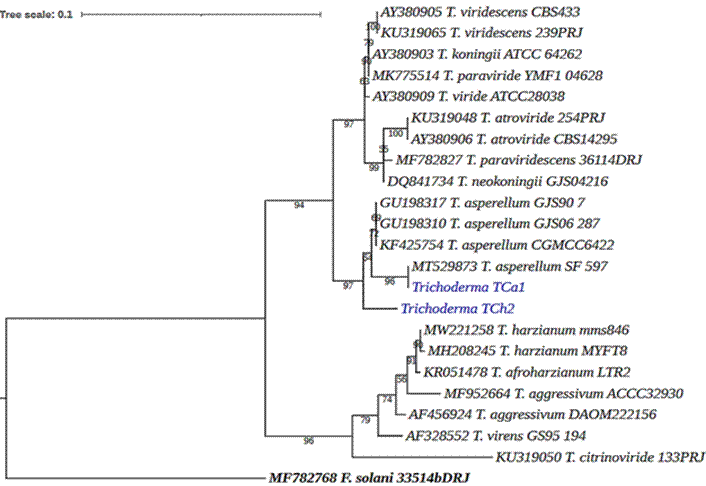
Figura 2. Árbol filogenético construido por el método de máxima verosimilitud, a partir de las secuencias nucleotídicas de ITS del GenBank y nuestros aislados (en azul), en programa IQ-TREE v. 2 y editado con ITOL, Fusarium solani es grupo externo.
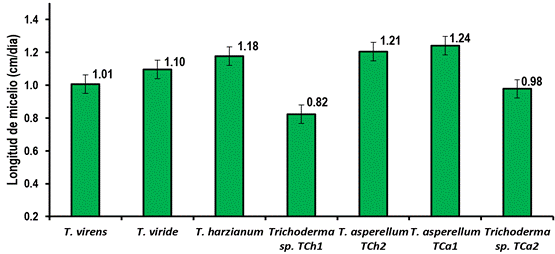
Figura 3. Tasa de crecimiento micelial de aislados de Trichoderma en medio PDA a 25 °C.
Inhibición de R. solani mediante placas pre colonizadas
Todas las especies de Trichoderma evaluadas evidenciaron una capacidad antagónica al desarrollarse sobre el micelio de R. solani en placas. Los aislados nativos de Cañete y Chincha (TCal y TCh2), clasificados como T. asperellum, demostraron la mayor efectividad de imbibición in vitro a los 7 días (Figura 4), denotando diferencias estadísticas significativas (α ≤ 0,05), lograron la mayor área de colonización e inhibición de hifas de R. solani, seguida por T. harzianum. Entre tanto, T. viride y T. virens presentaron menor porcentaje de colonización e inhibición del patógeno.
T. asperellum TCal y TCh2 resaltaron desde el inicio por su rápido crecimiento, alcanzando 4,8 y 4,0 cm (66,7% y 55,6% de inhibición respectivamente) de micelio sobre hifas de R. solani en 5 días, en comparación, T. harzianum, T. viride y T. virens crecieron entre 1,8 y 2,2 cm en el mismo período. A los 7 días, T. asperellum (TCal y TCh2) continuaron mostrando mayor crecimiento, alcanzando entre 6,3 y 6,1 cm (87,5% y 84,72%) lo que revela mayor área de parasitismo e inhibición sobre el patógeno. Estos resultados coinciden con investigaciones previas que evidencian la capacidad inhibitoria de Trichoderma mediante ensayos de sobrecreci-miento o placas precolonizadas, como los reportados por Infante & Martínez (2019) frente a R. solani, y por Leiva et al. (2020) y Santillán-Culquimboz et al. (2026) en cacao frente a Moniliophthora roreri y Fusarium spp., confir-mando su capacidad para inhibir el crecimiento micelial de fitopatógenos.
En la inhibición micelial por placas precolonizadas, el principal mecanismo de acción es el mico parasitismo, cuando la hifa del antagonista contacta con el patógeno ocurre un reconocimiento que desencadena la producción de diversas sustancias, como enzimas quitinolíticas y glucanasas. Estas sustancias facilitan la degradación y penetración del patógeno por parte de Trichoderma; simultánea-mente se produce un enrollamiento a la hifa del patógeno (Ávila-Oviedo et al., 2026; Kumari et al., 2025).
Inhibición de micelio mediante filtrado de Trichoderma
Todos los filtrados mostraron efectos inhibidores en el crecimiento del micelio de R. solani. A las 96 h T. asperellum TCal presentó 65,21%, seguido de T. asperellum TCh2 con 61,50%, sin diferencia significativa entre ellos. T. virens mostró una inhibición menor (33,96%). T. harzianum mostró 47,8%. TCal y TCh2 resultaron ser más efectivos al impedir el desarrollo de las hifas de R. solani (Figura 5). Visto al microscopio las hifas del patógeno eran distorsionadas y deformes, el crecimiento fue más lento en comparación con el testigo, probablemente por efecto de enzimas como glucanasas, quitinasas y celulíticas (Kumari et al., 2025; Saldaña-Mendoza et al., 2024), producidos por Trichoderma durante la fermentación. Cortez-Lázaro et al. (2025) refieren que Trichoderma produce varios metabolitos secundarios volátiles y no volátiles entre ellos pironas, koninginas, butenólidos, lactonas y otros compuestos, que tienen propiedades antifúngicas para patógenos de cultivos.
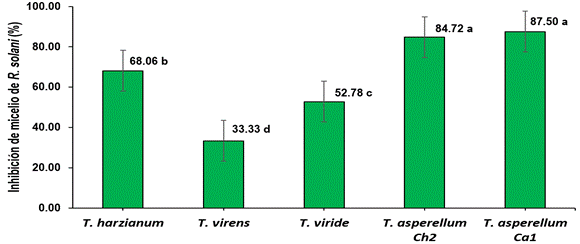
Figura 4. Inhibición del crecimiento micelial de R. solani por aislados de Trichoderma mediante el método de placas precolonizadas a los 7 días.
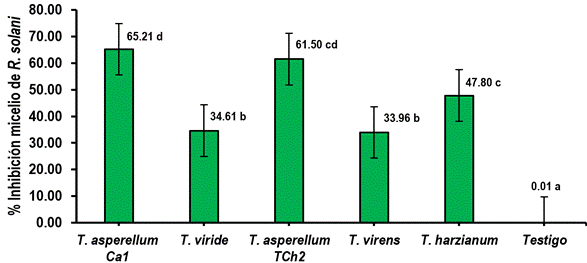
Figura 5. Inhibición del crecimiento micelial de R. solani mediante filtrados de cultivo de Trichoderma spp.
Concentración y viabilidad de conidias en PM
El aislado TCal multiplicado en sustrato maíz amarillo logró 1,47 × 10⁹ conidias g⁻¹, se extrajo en promedio 13,8 gramos de conidias por kilo de sustrato, con lo cual se formuló prototipos PH. En la Tabla 3 se presenta el promedio de conidias g⁻¹ de PH; no hubo variación significativa (p < 0,05) durante el almacenado en temperatura fría y ambiental en 90 días entre diferentes tipos de arcillas, la concentración de conidias en el tiempo se mantuvo constante. Los hallazgos de esta investigación son similares a estudios previos en formulados con talco, como el de Bhat et al. (2009), que muestra una reducción no significativa de conidios en formulaciones similares hasta los primeros 60 días.
En caolín con 6 % de ingrediente activo al momento de la formulación se obtiene 0,625 x 109 conidias g⁻¹, después de almacenar a 4 y 19 - 24 °C por 90 días resultó en 0,614 y 0,611 x 109 conidias g⁻¹ respectivamente; con 12 % de ingrediente activo se consiguió 1,21 x 10⁹ conidias g⁻¹, después de almacenar en 4 y 19 - 24 °C resultó en 1,20 y 1,19 x 10⁹ conidias g⁻¹ respectivamente. Con bentonita mantuvo la misma tendencia, los valores se pueden ver en la Tabla 3. Los resultados evidencian que una mayor cantidad de conidios mejora la concentración de ingrediente activo en el PH; aunque no hay datos de investigación disponibles sobre formulación en Perú para T. asperellum como polvo mojable, existen productos comerciales en el mercado nacional registrados en SENASA con concentraciones entre 108 y 109 conidias g⁻¹. Bhat et al. (2009) reportan que una formulación de T. harzianum en talco comenzó con 3,2 x 10⁸ conidias g⁻¹, después de almacenar 90 días en bolsas de polipropileno bajó a 1,2 x 10⁸ conidias g⁻¹. La concentración de 1,2 × 10⁹ conidias g⁻¹ obtenida en el presente estudio es comparable con la reportada para otros bioformulados de Trichoderma, cuyos contenidos iniciales se sitúan generalmente en el orden de 10⁸–10⁹ UFC.g⁻¹ (Mulatu et al., 2021; Choudhary et al., 2023; Kumar et al., 2023).
El análisis de porcentaje de germinación de conidios no mostró diferencia significativa a los 90 días de almacenamiento a 4 °C; sin embargo, a temperatura 19 - 24 °C, la viabilidad disminuyó ligeramente desde los 60 comparado con el primer día. No se observó interacciones significativas entre el tipo de arcilla y la concentración del ingrediente activo (6% y 12%) en ambas temperaturas de almacenamiento.
Los resultados muestran que almacenar el producto a temperatura ambiente reduce el porcentaje de germinación, afectando su viabilidad; a 90 días, en el formulado de bentonita con 12% de conidias bajó de 98,39% a 95,04%, en el formulado con 6% se redujo de 98,37% hasta 95,65%. En caolín con 12% de conidias, se redujo de 97,20% a 95,99%. En la concentración del 6% de conidias mantuvo la misma tendencia.
Varios investigadores obtuvieron formulados utilizando arcillas y otros materiales como portadores de esporas. Santos et al. (2012) formularon T. koningiopsis y T. asperellum empleando silicato de aluminio y almidón como granulado dispersable, logrando una vida útil de hasta 14 meses cuando almacenó a 8 y 18 °C, pero cuando almacenó a 28 °C se redujo significativa-mente entre 3-5 meses.
Pirttilä et al. (2021) mencionan que los formulados biológicos suelen ser afectados negativamente en su vida útil por las condiciones de almacenamiento y transporte post formulación, lo cual podría reducir su eficacia. Kumar et al. (2023) resaltan que la calidad de un formulado microbiano depende de la densidad de propágulos y de su capacidad para mantenerse viable en el tiempo, señalando además que portadores como talco, alginato y aceites vegetales presentan diferencias importantes en estabilidad y vida útil.
Tabla 3
Promedio de la concentración y viabilidad de conidias en formulados PM de T. asperellum almacenada durante 90 días
|
Portador |
% i.a. |
Cantidad de Conidios (×10⁹ g⁻¹) |
Germinación de conidios (%) |
||||
|
Inicio |
4 °C |
19- 24 °C |
Inicio |
4 °C |
19- 24 °C |
||
|
Caolín |
6 |
0,625 a |
0,614±0,02a |
0,611±0,05a |
98,25 a |
96,80±0,87 a |
95,51±1,28b |
|
12 |
1,212 b |
1,203±0,24b |
1,192±0,13b |
97,20 a |
97,03±1,86 a |
95,99±1,84b |
|
|
Bentonita |
6 |
0,629 a |
0,616±0,0 a |
0,613±0,04a |
98,37 a |
97,60±0,89 a |
95,65±0,77b |
|
12 |
1,226 b |
1,209±0,06b |
1,162±0,08b |
98,39 a |
96,43±1,88 a |
95,04±1,23b |
|
Nota: % i.a. Porcentaje de ingrediente activo (conidias de T. asperellum) con relación al portador en p/p.
Choudhary et al. (2023) demostraron que la formulación en talco permite conservar la viabilidad de T. asperellum por 12 meses, con mayor estabili-dad a bajas temperaturas (0 – 4 °C), confirmando que el talco es un portador químicamente inerte y adecuado para bioformulaciones. En productos elaborados artesanalmente en sustratos sólidos como arroz y maíz, la viabilidad de los propágulos disminuye rápidamente debido a la degradación del almidón por acción de las enzimas de Trichoderma, acompañado de la actividad del agua, transfor-mándose el sustrato en una masa pastosa propensa a contaminación durante el almacenamiento, lo que dificulta su uso efectivo en biocontrol. Las formulaciones con caolín, bentonita y otras arcillas son económicas y de fácil disponibilidad (Martínez-Medina et al., 2009), facilitan su envasado, almacenaje, transporte y comercialización.
Humectabilidad, suspendibilidad y pH del PH
El tiempo de humectabilidad de todos los prototipos fue menor a 60 segundos después de añadir en agua a temperatura ambiente (21 °C). No se observaron diferencias significativas entre diferentes tipos de formulados después de almacenarlos hasta 90 días. Los tiempos de humectación inicial para bentonita fue de 43,4 a 57,3 segundos, y 56,42 a 51,46 segundos para caolín. Después de almacenar durante 90 días lavariación de la humectabilidad no fue significativa (Tabla 4). Aunque muchos estudios sobre formulaciones de Trichoderma con arcillas no mencionan este aspecto. Perdomo et al. (2021) usaron bentonita para formular Trichoderma, obteniendo un tiempo de humectabilidad superior a un minuto.
La determinación de la
humectabilidad busca asegurar que los polvos mojables formulados con talcos o
arcillas se dispersen, en menos de un minuto sin agitación y se mantengan en
suspensión (FAO y OMS 2022). Las arcillas tienen
distintas capacidades de humectación, sus propiedades laminares les confieren
una alta afinidad por el agua y capacidad de dispersión. Estudios confir-man
que la bentonita hidratada genera dispersio-nes coloidales estables gracias a
su estructura de doble porosidad (Vasconcelos et al., 2026), mien-tras que el
contenido de agua regula la cohesión y suspensión de partículas (Zheng &,
2025). Estas características explican por qué los portadores arcillas en polvo
mojable favorecen una dispersión rápida y una suspensión prolongada en agua.
Los valores de suspendibilidad logrados en los formulados fueron satisfactorios (Tabla 4). Al momento de la formulación, los valores fueron entre 81% – 83%, después de 90 días de almacena-miento a 4 °C se mantuvo entre 81,74% – 83,8%, y 82,3% – 84% a 19 - 24 °C; es decir, no variaron significativamente durante el tiempo de almace-nado. Los plaguicidas PM deben dispersarse completamente y mantener al menos 60% del ingrediente activo en suspensión después de 1 min, es decir la sedimentación debe ser lenta.
Marzban et al. (2021) formularon Bacillus thuringiensis con caolín y tierra diatomea, obteniendo una suspendibilidad de entre 20% y 67%, relativamente baja, aunque el tiempo de humectabilidad fue de 11 a 19 s. Por otro lado, Perdomo et al. (2021) lograron obtener formulados polvos mojables a base talco, bentonita, almidón de yuca y conidias de T. asperellum consiguiendo una suspendibilidad de 97,9% y 97,2% después de almacenar a 4 y 30 °C durante 6 meses. En este estudio, la humectabilidad y suspendibilidad del prototipo PM no mostraron cambios significativos durante el periodo de almacenamiento en las dos condiciones de temperatura. La prueba de viabilidad de conidias después del almacenamiento mantuvo estándares aceptables comparado con estudios de otros investigadores. La caolinita y la bentonita tienen diversas aplicaciones industriales debido a su no toxicidad para la salud humana. Sus partículas finas permiten incluir en formulaciones de varios plaguicidas polvo mojables.
Las conidias de Trichoderma spp. son hidrofóbicas porque su superficie está recubierta por hidrofobinas (Cai et al., 2021), que forman una capa que repele el agua y favorece su dispersión aérea. Estas proteínas reducen fuertemente la tensión superficial del agua y produce superficies muy poco mojables (Medina & Rangel, 2025), esta característica influye a que las formulaciones PM no se disuelva rápidamente en agua, por lo que requiere un surfactante en el formulado.
Severidad de la enfermedad por R. solani bajo tratamientos con formulados PH
La severidad del daño en las plantas tratadas con formulados PH de Trichoderma fueron leves, los tratamientos biológicos más efectivos fueron las que contenían 12% de conidias, mostrando entre 36,6 y 38,3 % de severidad. En contraste, el grupo testigo inoculado mostró una severidad del 85%, con síntomas de cancros prominentes (1,0 -2,5 cm), estrangulamiento en el cuello, marchitez severa y muerte una semana después de la inoculación. Las plantas tratadas con PH no mostraron signos de marchitez, aunque presentaron lesiones leves y continuaron su desarrollo, no presentó diferencia en altura (Tabla 5 y Figura 6). Las plantas tratadas con benomyl mostraron la incidencia y severidad más baja, con cancros muy pequeños.
Tabla 4
Promedio de cuatro réplicas de la suspendibilidad, humectabilidad y pH de formulados de T. asperellum evaluados al inicio y después de 90 días de almacenamiento a 4 °C y 19–24 °C
|
Portador inerte |
|
Suspendibilidad (%) |
Humectabilidad (s) |
pH |
||||||
|
% i.a. |
Inicio |
4 °C |
19-24 °C |
Inicio |
4 °C |
19-24 °C |
Inicio |
4 °C |
19-24 °C |
|
|
Caolín |
6 |
81,01 |
82,75 |
83,50 |
56,42 |
50,02 |
52,25 |
6,68 |
6,66 |
6,67 |
|
12 |
82,25 |
81,74 |
82,25 |
51,46 |
57,50 |
56,75 |
6,64 |
6,66 |
6,65 |
|
|
Bentonita |
6 |
82,75 |
83,8 |
84,00 |
43,4 |
50,25 |
49,75 |
6,71 |
6,70 |
6,71 |
|
12 |
83,00 |
82,50 |
83,75 |
57,31 |
53,50 |
49,25 |
6,66 |
6,65 |
6,66 |
|
Nota: % i.a. = porcentaje de ingrediente activo, expresado como la proporción de conidias de T. asperellum respecto a la masa del portador inerte (p/p), s = segundo.
Tabla 5
Severidad, eficacia y altura de planta en el control de R. solani con formulados de T. asperellum polvo humectable en plantas de algodón
|
Trat |
Severidad de daño (%) |
Altura de planta (cm) |
Eficacia de control*(%) |
|
C06 |
53,67 b |
28,43±0,69 ab |
36,9 b |
|
B06 |
55,00 b |
29,49±2,59 ab |
35,3 b |
|
C12 |
36,13 c |
30,15±0,71 ab |
57,5 c |
|
B12 |
35,43 c |
30,36±1,08 ab |
58,3 c |
|
CQ |
18,33 d |
30,66±1,11 a |
78,4 d |
|
Ctrl 1 |
85,00 a |
27,85±1,52 b |
0,0 a |
|
Ctrl 2 |
0,00 e |
29,87±0,99 ab |
100,0 e |
Nota. C = caolín y B = bentonita; los números (6 y 12) indican el porcentaje de conidias del formulado. CQ = control químico (benomilo); Ctrl1 = control inoculado con R. solani; Ctrl2 = testigo absoluto (sin patógeno ni tratamiento). *Calculado con la fórmula de Abbott (1925), ((Stest-Ti)/(Stest)) x100, S = severidad de daño, Ti= iésimo tratamiento, test= testigo.
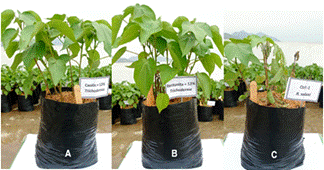
Figura 6. Crecimiento de algodón tratado con formulado polvo humectable de T. asperellum. A: Formulado en caolín + 12 % de conidias, B: bentonita +12 % conidias, C: testigo.
Resultados en el mismo sentido hallaron Martínez-Medina et al. (2009), reportando que plantas de melón tratadas con formulados de T. harzianum en bentonita y vermiculita contra Fusarium tuvieron una incidencia entre 76% y 46%, pero su creci-miento y peso fresco permanecieron normales. En nuestro estudio, la presencia de leves cancros observados en plantas de algodón tratadas con Trichoderma probablemente se debió a que su aplicación se realizó tres días después de la inoculación con R. solani, momento en el que ya se habían manifestado los primeros síntomas de la enfermedad.
Existen diversos métodos para controlar R. solani, como el uso de productos químicos, sin embargo, está documentado su efecto negativo en el ecosistema agrícola; el control con Trichoderma, es ampliamente estudiado como alternativa ecológica (Avila-Oviedo et al. 2026; Majumdar et al., 2022). Trichoderma actúa mediante micoparasitismo, antibiosis y promoción del crecimiento vegetal (Irfan et al., 2026; Jiménez Bremont et al., 2026).
Eficacia de control
Los tratamientos biológicos con Trichoderma en formulaciones al 12% de conidios en bentonita y caolín demostraron mayor eficacia de control sobre R. solani, con tasas de control del 58,3% y 57,5%, respectivamente (Tabla 5 y Figura 7); estos resultados fueron significativamente mejores (α ≤ 0,05) en comparación con formulaciones PH con 6% de esporas. La eficacia depende de factores como la concentración de conidias, su viabilidad.
La concentración conidial del 12% en el PH (equivalente a 1,2 x 10⁹ UFC/g) supera el mínimo recomendado por Kumar et al. (2014) (2 x 10⁶ UFC/g), está dentro del rango general empleado en Europa de 105 a 109 UFC/g (Natsiopoulus et al., 2022; Sokhadani et al., 2016). Martínez et al. (2023) refieren que los productos biológicos exitosos deben estar entre107 a 1010 UFC/g. En Perú, la regulación de pesticidas químicos y biológicos está cubierta por el DS-001-2015-MINAGRI, que no especifica concentraciones mínimas para los formulados biológicos, lo que ha llevado a una variabilidad en la calidad de los productos, incluyendo problemas con la viabilidad y pureza de los propágulos.
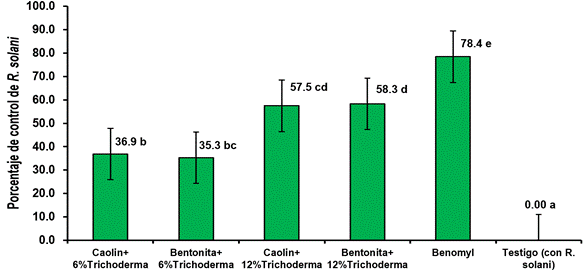
Figura 7. Porcentaje de control (eficacia) de R. solani en algodón con formulados de T. asperelllum TCal.
CONCLUSIONES
Se aislaron cuatro cepas de Trichoderma de las localidades de Cañete y Chincha, Perú; dos fueron identificados molecularmente como T. asperellum mediante el gen ITS; en pruebas de antagonismo in vitro estos aislados demostraron ser efectivos en el control de R. solani obtenido de plantas de algodón. Las formulaciones polvo humectable logradas al 12% de conidias de T. asperellum con caolín y bentonita redujeron la severidad de la cancrosis en el cuello de plantas de algodón causada por R. solani en condiciones de invernadero. La formulación desarrollada permitirá un uso más eficiente del antagonista, al optimizar parámetros críticos de estabilidad y manejo, lo que facilita su almacenamiento, transporte y su potencial adopción en programas de manejo fitosanitario.
REFERENCIAS BIBLIOGRÁFICAS
Abo-Elyousr, K. A. M., Ali, E. F., Alqurashi, A. S., Abdel-Aal, A. M. K., & Sallam, N. M. A. (2026). Using Trichoderma spp. to biological control of Rhizoctonia solani root rot in faba beans. Journal of Basic Microbiology, 66(6), e70175. https://doi.org/10.1002/jobm.70175
Ahumada, D. (2026). Disease management in cotton. En K. L. Edmisten, D. Ahumada, C. W. Cahoon, G. D. Collins, J. H. Dorfman, L. Gatiboni, A. Gorny, D. Reisig, E. Ozlu, D. Washburn, & D. H. Hardy (Eds.), Cotton Information (cap. 9). NC, State Extension. https://content.ces.ncsu.edu/disease-management-in-cotton
Ajayi-Oyetunde, O. O., & Bradley, C. A. (2018). Rhizoctonia solani: Taxonomy, population biology and management of rhizoctonia seedling disease of soybean. Plant Pathology, 67(1), 3–17. https://doi.org/10.1111/ppa.12733
Akber, M. A., & Fang, X. (2024). Research progress on diseases caused by the soil-borne fungal pathogen Rhizoctonia solani in alfalfa. Agronomy, 14, 1483. https://doi.org/10.3390/agronomy14071483
Arévalo, E., Cayotopa, J., Olivera, D., Gárate, M., Trigoso, E., do Bomfim Costa, D., & León, B. (2017). Optimización de sustratos para la producción de conidias de Trichoderma harzianum por fermentación sólida en la región de San Martín, Perú. Journal of High Andean Research, 19(2), 135-144. https://doi.org/10.18271/ria.2017.272
Ávila-Oviedo, J. L., & Chávez-Avilés, M. N. (2026). Ecological versatility and biocontrol mechanisms of Trichoderma spp.: Toward sustainable agriculture. Discover Applied Sciences, 8, 230. https://doi.org/10.1007/s42452-026-08253-5
Bhat, K. A., Anwar, A., Lone, G. M., Hussain, K., & Nazir, G. (2009). Shelf life of liquid fermented product of Trichoderma harzianum in talc. J. Mycol Pl Pathol, 39(2), 263-265.
Bhunjun, C. S., Chen, Y. J., Phukhamsakda, C., Boekhout, T., Groenewald, J. Z., McKenzie, E. H. C., Francisco, E. C., Frisvad, J. C., Groenewald, M., Hurdeal, V. G., Luangsa-Ard, J., Perrone, G., Visagie, C. M., Bai, F. Y., Błaszkowski, J., Braun, U., de Souza, F. A., de Queiroz, M. B., Dutta, A. K., Gonkhom, D., … & Crous, P. W. (2024). What are the 100 most cited fungal genera?. Studies in Mycology, 108, 1–411. https://doi.org/10.3114/sim.2024.108.01
Cai, F. & Druzhinina, I. S. (2021). In honor of John Bissett: authoritative guidelines on molecular identification of Trichoderma. Fungal Diversity, 107, 1–69. https://doi.org/10.1007/s13225-020-00464-4
Cai, F., Dou, K., Wang, P., Chenthamara, K., Chen, J., & Druzhinina, I. S. (2022). The current state of Trichoderma taxonomy and species identification. En N. Amaresan, A. Sankaranarayanan, M. Kumar Dwivedi, & I. S. Druzhinina (Eds.), Advances in Trichoderma biology for agricultural applications (pp. 3–35). Springer. https://doi.org/10.1007/978-3-030-91650-3_1
Cai, F., Zhao, Z., Gao, R., Chen, P., Ding, M., & Jiang, S. (2021). The pleiotropic functions of intracellular hydrophobins in aerial hyphae and fungal spores. PLoS Genet, 17(11), e1009924. https://doi.org/10.1371/journal.pgen.1009924
Castillo‑Arévalo, T., Castillo‑Cruz, B., & Santos, D. (2025). Selection of native isolates of Trichoderma spp. on different natural substrates for mass multiplication. Scholars Journal of Agriculture and Veterinary Sciences, 12(10), 278–284. https://doi.org/10.36347/sjavs.2025.v12i10.001
Choudhary, A. K., Singh, N., & Buttar, D. S. (2023). Mass multiplication and shelf life of Trichoderma asperellum in talc based bioformulation. Agricultural Research Journal, 60(2), 318–321. https://doi.org/10.5958/2395-146X.2023.00047.9
Cortez-Lázaro, A. A., Vázquez-Medina, P. J., Caro-Degollar, E. M., García Evangelista, J. V., Cortez-Lázaro, R. A., Rojas-Paz, J. L., Legua-Cardenas, J. A., Fernandez-Herrera, F., Pesantes-Rojas, C. R., Ocrospoma-Dueñas, R. W., Oliva-Cruz, M., Manes-Cangana, E., Romero Bozzetta, J., & Leiva Espinoza, S. T. (2025). Global trends in Trichoderma secondary metabolites in sustainable agricultural bioprotection. Frontiers in Microbiology, 16, 1595946. https://doi.org/10.3389/fmicb.2025.1595946
Elad, Y., Chet, I., & Henis, Y. (1981). A selective medium for improving quantitative isolation of Trichoderma spp. from soil. Phytoparasitica, 9, 59–67. https://doi.org/10.1007/BF03158330
FAO y OMS (Organización Mundial de las Naciones Unidas para la Alimentación y Agricultura y Organización Mundial de la Salud). (2022). “Manual sobre la elaboración y uso de las especificaciones de los plaguicidas químicos de la FAO y de la OMS”. Segunda edición. Roma, FAO y Ginebra, OMS. https://doi.org/10.4060/cb8401es
Faustino, H. S., Guerrero, G. D., Limache, M. C., Payano, M. K. & Torres. G. J. (2023). Materias minerales clave para el desarrollo de la economía verde en el Perú. Revista del Instituto de Investigación de la Facultad de Minas, Metalurgia y Ciencias Geográficas, 26(51), e25270. https://doi.org/10.15381/iigeo.v26i51.25270
Gams, W. & Bissett, J. (1998). Morphology and Identification of Trichoderma. En Kubicek, C.P. and Harman, G.E. (Eds.), Trichoderma and Gliocladium: Basic Biology, Taxonomy and Genetics (pp. 1-31). London. Taylor and Francis Ltd. https://doi.org/10.1201/9781482295320
Goulart, A. C. (2018). Setting a rating scale for assess Rhizoctonia solani lesions on cotton, soybean and common bean seedlings. Bioscience Journal, 1, 1632-1639. https://doi.org/10.14393/BJ-v34n6a2018-42657
Goulart, A. C. (2021). Influence of previous crops and fungicide seed treatment in the incidence and control of damping-off caused by Rhizoctonia solani in cotton seedlings under greenhouse conditions. Summa Phytopathologica, 47(3), 157-161. https://doi.org/10.1590/0100-5405/253385
Halifu, S., Deng, X., Song, X., Song, R., & Liang, X. (2020). Inhibitory Mechanism of Trichoderma virens ZT05 on Rhizoctonia solani. Plants, 9(7), 912. https://doi.org/10.3390/plants9070912
Hamrouni, R., Walker, V., Farnet-Da Silva, A.-M., Bresson, H., Roussos, S., & Dupuy, N. (2026). Biopesticide production from Trichoderma harzianum by solid-state fermentation: Impact of drying process on spore viability. Fermentation, 12(1), 19. https://doi.org/10.3390/fermentation12010019
Harries, E., Berruezo, L., Mercado Cárdenas, G., & Rajal, V. (2026). Biocontrol of Rhizoctonia solani infection in common bean (Phaseolus vulgaris) by Trichoderma species from northwestern Argentina. Journal of Applied Microbiology, 137(3), lxag053. https://doi.org/10.1093/jambio/lxag053
Heflish, A. I. (2020). Isolation and molecular characterization of Rhizoctonia solani, the causal agent of cotton damping-off disease. Egyptian Academic Journal of Biological Sciences, G. Microbiology, 12(2), 89–99. https://doi.org/10.21608/eajbsg.2020.140931
Honles, J., Cerapio, J. P., Monge, C., Marchio, A., Ruiz, E., Fernández, R., Casavilca-Zambrano, S., Contreras-Mancilla, J., Vidaurre, T., Condom, T., Zerathe, S., Dangles, O., Deharo, É., Herrera-Zúñiga, J., Pineau, P., & Bertani, S. (2026). Mapping pesticide mixtures to cancer risk at the country scale with spatial exposomics. Nature Health, 1, 520–531. https://doi.org/10.1038/s44360-026-00087-0
Hoyos-Carvajal, L., Chaparro, P., Abramsky, M., Chet, I., & Orduz, S. (2008). Evaluación de aislamientos de Trichoderma spp. contra Rhizoctonia solani y Sclerotium rolfsii bajo condiciones in vitro y de invernadero. Agronomía Colombiana, 26(3), 451-458.
Infante, D., & Martínez, B. (2019). Actividad antagónica de cepas de Trichoderma asperellum frente a aislados de Rhizoctonia solani. Revista de Protección Vegetal, 34(2), 123–132.
Irfan, M. F., Ali, A., Noor, R., Ijaz, A., Rafiq, H., & Mirza, F. S. (2026). Harnessing the biocontrol potential of Trichoderma: Mechanisms, applications, and future prospects in sustainable crop protection. Physiological and Molecular Plant Pathology, 145, 103331. https://doi.org/10.1016/j.pmpp.2026.103331
Jiménez Bremont, J. F., Santiago Velasco, M., Bohórquez Quintero, M. Á., González Pérez, E., & Rodríguez-Kessler, M. (2026). Mechanisms of Trichoderma-mediated plant growth promotion: From metabolites to plant responses. Plants, 15(14), 2180. https://doi.org/10.3390/plants15142180
Jin G. S, Ji J, Zhao G-L, Liang B, Li X-Z, Yu Y, Zhuang W-Y, Li Y, Ji R-Q, Zhu Z-X (2026) Taxonomy and phylogeny of five novel Trichoderma (Hypocreaceae, Hypocreales) species isolated from decaying wood in China. MycoKeys 133: 67-102. https://doi.org/10.3897/mycokeys.133.187172
Khan, M. A., Wahid A., Ahmad, M., Tahir, M. T., Ahmad, S., & Hasanuzzaman, M. (2020). World cotton production and consumption: an overview. In: Ahmad, S., & Hasanuzzaman, M. (eds.), Cotton Production and Uses (pp. 1-8). Springer Singapore. https://doi.org/10.1007/978-981-15-1472-2_1
Kumar, S., Kumar, R., & Om, H. (2013). Shelf-life of Trichoderma viride in talc and charcoal based formulations. Indian Journal of Agricultural Sciences, 83(5), 566–569
Kumar, S., Thakur, M. & Rani, A. (2014). Trichoderma: Mass production, formulation, quality control, delivery and its scope in commercialization in India for the management of plant diseases. African Journal of Agricultural Research, 9(53), 3838-3852.
Kumar, V., Koul, B., Taak, P., Yadav, D., & Song, M. (2023). Journey of Trichoderma from pilot scale to mass production: A Review. Agriculture, 13(10), 2022. https://doi.org/10.3390/agriculture13102022
Kumari, R., Koul, B., Kumar, V., Kumar, A., Somal, M. K., & Sachan, R. S. K. (2025). Protease and chitinase activity of Trichoderma isolates and their synergy with biochar in enhancing chickpea defense related enzymes. Frontiers in microbiology, 16, 1699251. https://doi.org/10.3389/fmicb.2025.1699251
Leiva, L., Pérez, J., & Ramírez, M. (2020). Assessment of the potential of Trichoderma spp. strains native to Bagua (Amazonas, Peru) in the biocontrol of frosty pod rot (Moniliophthora roreri). Agronomy, 10(9), 1376. https://doi.org/10.3390/agronomy10091376
Majumdar, R., Strausbaugh, C. A., Galewski, P. J., Minocha, R., & Rogers, C. W. (2022). Cell-wall-degrading enzymes-related genes originating from Rhizoctonia solani increase sugar beet root damage in the presence of Leuconostoc mesenteroides. International Journal of Molecular Sciences, 23(3), 1366. https://doi.org/10.3390/ijms23031366
Mamani, R. P., Mayta, R. A., & Flores, R. C. (2022). Impact of metal mining on per capita family income in Peru. Miner Econ, 35, 283–294. https://doi.org/10.1007/s13563-021-00298-9
Martínez, Y., Ribera, J., Schwarze, F. W. & De France, K. (2023). Biotechnological development of Trichoderma based formulations for biological control. Applied Microbiology and Biotechnology, 107(18), 5595–5612. https://doi.org/10.1007/s00253-023-12687-x
Martínez-Medina, A., Roldán, A., & Pascual, J. A. (2009). Performance of a Trichoderma harzianum Bentonite–vermiculite formulation against Fusarium wilt in seedling nursery melon plants. HortScience horts, 44(7), 2025-2027. https://doi.org/10.21273/HORTSCI.44.7.2025
Marzban, R., Babaei, J., Kalantari, M., & Saberi, F. (2021). Preparation of wet table powder formulation of Bacillus thuringiensis kd2. Journal of Applied Biological Sciences, 15(3), 285-293.
Medina, H. R., & Rangel, D. E. (2025). Metarhizium acridum exhibits a different conidial hydrophobicity than other insect-pathogenic fungi. Fungal Biology, 129(2), 101547. https://doi.org/10.1016/j.funbio.2025.101547
Mendoza-Mendoza, A., Esquivel-Naranjo, E. U., Soth, S., Whelan, H., Alizadeh, H., Echaide-Aquino, J. F., Kandula, D., & Hampton, J. G. (2024). Uncovering the multifaceted properties of 6-pentyl-alpha-pyrone for control of plant pathogens. Frontiers in Plant Science, 15, 1420068. https://doi.org/10.3389/fpls.2024.1420068
Miguel-Ferrer, L., Romero-Arenas, O., Andrade-Hoyos, P., Sánchez-Morales, P., Rivera-Tapia, J. & Fernández-Pavía, S. P. (2021). Actividad antifúngica de Trichoderma harzianum y T. koningiopsis contra Fusarium solani asociado en la germinación y vigor de plántulas de chile Miahuateco. Revista Mexicana de Fitopatología, 39(2), 228-247. https://doi.org/10.18781/r.mex.fit.2101-5
MINAGRI (Ministerio de Agricultura y Riego). (2019). Plan Nacional de Cultivos 2019, Campaña Agrícola 2019-2020. https://cdn.www.gob.pe/uploads/document/file/471867/Plan_Nacional_de_Cultivos_2019_2020b.pdf
Mulatu, A., Alemu, T., Megersa, N., & Vetukuri, R. R. (2021). Optimization of culture conditions and production of bio-fungicides from Trichoderma species under solid-state fermentation using mathematical modeling. Microorganisms, 9(8), 1675. https://doi.org/10.3390/microorganisms9081675
Natsiopoulos, D., Tziolias, A., Lagogiannis, I., Mantzoukas, S., & Eliopoulos, P. A. (2022). Growth-Promoting and protective effect of Trichoderma atrobrunneum and T. simmonsii on Tomato against soil borne fungal pathogens. Crops, 2(3), 202–217. https://doi.org/10.3390/crops2030015
Parmeter, J. R., Jr., & Whitney, H. S. (1970). Taxonomy and nomenclature of the imperfect state. En J. R. Parmeter, Jr. (Ed.), Biology and pathology of Rhizoctonia solani (pp. 7–19). University of California Press.
Perdomo, C. E., Villamizar, L. F., Báez, F. J., Viera, W. F., & Jackson, T. (2021). Evaluación de la estabilidad de cuatro sistemas de liberación para la formulación de conidios de Trichoderma asperellum. RIA. Revista de investigaciones agropecuarias, 47(2), 249-258.
Pirttila, A. M., Mohammad, P. H., Baruah, N., & Koskimäki, J. J. (2021). Biofertilizers and Biocontrol Agents for Agriculture: how to dentify and develop new potent microbial strains and traits. Microorganisms, 9(4), 817. https://doi.org/10.3390/microorganisms9040817
Sahu, S. K., Sunderrao, R. R., Sahu, R., & Tandon, A. L. (2024). Geographical variation in pathogenicity of Rhizoctonia solani isolates from soybean plants in Chhattisgarh, India. Microbiology Research Journal International, 34(12), 255–260. https://doi.org/10.9734/mrji/2024/v34i121526
Saldaña-Mendoza, S. A., Chávez-González, M. L., Ramírez-Guzmán, K. N., & Aguilar, C. N. (2024). Evaluation of the biocontrol effect of Trichoderma sp. Trs GT2 extracts produced by fermentation processes against Botrytis cinerea Btcr GM3. Environmental Quality Management, 33(3), 129–140. https://doi.org/10.1002/tqem.22071
Sandoval, S. J., Palma, O, M., Huertas, Q. E., Chávez, C., A., & Castillo, R. E. (2023). Gestión final de envases de plaguicidas y la minimización de la contaminación ambiental en campos de cultivo. Revista Ciencia Norandina, 6(2), 279–289. https://doi.org/10.37518/2663-6360X2023v6n2p279
Santillán-Culquimboz, J., Torres, P., & Huamán, R. (2026). Endophytic Trichoderma species associated with Theobroma cacao L.: Identification and biocontrol potential against Moniliophthora roreri and Fusarium sp. Frontiers in Microbiology, 17, 1811538. https://doi.org/10.3389/fmicb.2026.1811538
Santos, A., García, M., Cotes, A. M., & Villamizar, L. (2012). Efecto de la formulación sobre la vida útil de bioplaguicidas a base de dos aislamientos colombianos de Trichoderma koningiopsis Th003 y Trichoderma asperellum Th034. Revista Iberoamericana de Micología, 29(3), 150–156. https://doi.org/10.1016/j.riam.2011.11.002
Sokhandani, Z., Moosavi, M., & Basirnia, T. (2016). Optimum concentrations of Trichoderma longibrachiatum and Cadusafos for controlling Meloidogyne javanica on zucchini plants. J Nematol, 48(1), 54–63. https://doi.org/10.21307/jofnem-2017-009
Townsend, G. R. & Heuberger, J. W. (1943). Methods for estimating losses caused by diseases in fungicidal experiments. Plant Disease Reporter, 27, 340-343.
Vasconcelos, R., Gens, A., Rodríguez, C. E., & Vaunat, J. (2026). Modelling the hydration of bentonites under isothermal and non-isothermal conditions using a double-porosity approach. Applied Clay Science, 285, 108148. https://doi.org/10.1016/j.clay.2026.108148
Vashisht, P., Yadav, N. K., Malik, V. K., Prahlad, Yadav, P., Kumari, D., & Sapna. (2026). Morpho-cultural and biochemical characterization of Trichoderma isolates and their efficacy in controlling cotton root rot. Plant Science Today, 13(Special Issue 1). https://doi.org/10.14719/pst.11625
White, T. J., Bruns, T. D., Lee, S. B., & Taylor, J. W. (1990). Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics. En M. A. Innis, D. H. Gelfand, J. J. Sninsky, & T. J. White (Eds.), PCR protocols: A guide to methods and applications (pp. 315–322). Academic Press. https://doi.org/10.1016/B978-0-12-372180-8.50042-1
You, J., Zhang, J., Wu, M., Yang, L., Chen, W., & Li, G. (2016). Multiple criteria-based screening of Trichoderma isolates for biological control of Botrytis cinerea on tomato. Biological Control, 101, 31–38. doi: http://dx.doi.org/10.1016/j.biocontrol.2016.06.006
Zheng, C., & Yuan, Y. (2025). Study on the effect of water content on physical properties of bentonite. PloS one, 20(1), e0303522. https://doi.org/10.1371/journal.pone.0303522