Desempeño
comparativo de dietas específicas para tilapia vs. trucha sobre el crecimiento,
eficiencia alimenticia y rentabilidad de Oreochromis niloticus cultivada
en sistemas de bajo recambio hídrico
Comparative
performance of tilapia-specific vs. trout diets on growth, feed efficiency and
profitability of Oreochromis niloticus reared in low-water-exchange
systems
María Hurtado Zamora1,
2; Luis Gonzales Molina2; Cruz Prieto Dueñas2; Jhon
Alvarez Veliz2;
Francisco
Ganoza Chozo2; Jean García Valladares2; Jesús Barreto
Meza1; Esteban Airahuacho Bautista3*
1 Departamento Académico
de Ingeniería Pesquera e ingeniería Acuícola, Universidad Nacional José
Faustino Sánchez Carrión, Huacho, Lima, Perú.
2 Área de Investigaciones
Pesqueras, Instituto del Mar del Peru, Huacho, Lima, Perú.
* Autor
corresponsal: fairahuacho@unjfsc.edu.pe (E. Airahuacho Bautista).
ORCID
de los autores:
RESUMEN
La investigación evaluó el efecto de dos
dietas comerciales con densidades nutricionales contrastantes: alimento para
tilapia (T1) y alimento para trucha (T2), sobre el desempeño zootécnico y la
eficiencia económica de juveniles tempranos de Oreochromis niloticus en
un sistema de bajo recambio hídrico durante 112 días. Alevines de 30 días de
edad fueron aclimatados y posteriormente distribuidos al azar en dos
tratamientos y cuatro réplicas. Los parámetros fisicoquímicos se mantuvieron
dentro de los rangos óptimos para la especie, validando la viabilidad del
sistema de bajo recambio. Aunque el tratamiento T2 promovió un mayor desarrollo
longitudinal (p < 0,01), no se hallaron diferencias estadísticas
significativas en el peso corporal final (102,8 g para T1 vs. 116,8 g para T2;
p = 0,13). La dieta T1 demostró una superioridad metabólica con una conversión
alimenticia de 0,72 frente a 0,87 en T2 (p < 0,01), atribuida a una mejor
utilización de nutrientes y al aprovechamiento del alimento natural. El
análisis económico reveló que el uso de alimento para trucha es
contraproducente, alcanzando apenas el 64% de la eficiencia económica relativa obtenida
con T1, debido a un mayor costo de alimentación (71% superior). Se concluye que
la dieta específica para tilapia optimiza el rendimiento biológico y financiero
en O. niloticus bajo sistemas de bajo recambio costero.
Palabras
clave:
eficiencia
alimenticia; eficiencia económica; nutrición acuícola; sistemas de bajo
recambio.
ABSTRACT
This study evaluated the
effect of two commercial diets with contrasting nutritional densities, tilapia
feed (T1) and trout feed (T2), on the zootechnical performance and economic
efficiency of early juvenile Oreochromis niloticus reared in a low
water-exchange system for 112 days. Thirty-day-old fingerlings were acclimated
and subsequently randomly distributed into two treatments with four replicates
each. Physicochemical parameters remained within optimal ranges for the
species, validating the viability of the low-exchange system. Although the T2
treatment promoted greater longitudinal growth (p<0.01), no statistically
significant differences were observed in final body weight (102.8 g for T1 vs.
116.8 g for T2; p=0.13). The T1 diet demonstrated metabolic superiority,
achieving a feed conversion ratio (FCR) of 0.72 compared to 0.87 in T2
(p<0.01), which was attributed to improved nutrient utilization and the
exploitation of natural food sources. Economic analysis revealed that using
trout feed is counterproductive, attaining only 64% of the relative economic
efficiency obtained with T1 due to a 71% higher feeding cost. It is concluded
that a tilapia-specific diet optimizes both biological performance and
financial yield in O. niloticus cultured in coastal low water-exchange
systems.
Keywords: feed efficiency;
economic efficiency; aquaculture nutrition; low-exchange systems.
Recibido: 04-07-2026.
Aceptado: 30-09-2026.
La acuicultura es una
actividad determinante para garantizar la seguridad alimentaria mundial y es el
sector de producción de alimentos que más se ha expandido en los últimos 50
años (Novodworski et al., 2024). Entre los peces más cultivados se encuentra la
tilapia del Nilo (Oreochromis niloticus), una especie ampliamente
producida por su rusticidad (Nunes et al., 2024), y que se destaca como la
tercera especie más cultivada a nivel mundial (Novodworski et al., 2024).
El crecimiento de la
tilapia en sistemas de producción intensivo está basado en el uso de alimento
balanceado, que llega a representar entre el 60 a 80% de los costos de
producción (Ragasa et al., 2022), por ello, su gestión es crítico para mejorar
la rentabilidad. El aporte equilibrado de nutrientes, como la proteína junto
con la energía, permitirá al organismo manifestar todo su potencial genético
reflejado en un óptimo crecimiento. Las proteínas dietarías, hidrolizadas en el
intestino y absorbidas como aminoácidos, parte de ellas serán desaminadas y el
nitrógeno resultante serán excretadas en el agua como amoniaco (Hardy y
Kaushik, 2021). Por tanto, el aporte innecesario de proteína podría contribuir
con los problemas de eutrofización y la calidad de agua (Wang et al., 2019),
por lo que la utilización de dietas equilibradas en nutrientes con relación a
la energía optimizará el crecimiento y la salud de los animales, y minimizará
los impactos medioam-bientales negativos (Novodworski et al., 2024). Este
equilibrio es particularmente relevante en sistemas de bajo recambio hídrico,
donde la acumulación de metabolitos nitrogenados puede comprometer el desempeño
zootécnico.
La tilapia, al ser un
típico pez herbívoro, aprovecha eficientemente el alto contenido de fibra de
dietas compuestos por la harina de soya, una de las fuentes de proteína más
utilizadas en la alimentación animal (Peng et al., 2024). La fibra dietaria es
clave para mantener la función intestinal normal, a partir de su fermentación
microbiana que ocurre principalmente en el intestino delgado y grueso distal, y
de la generación de metabolitos microbianos que son la principal fuente de
energía para las células intestinales (Hu et al., 2023).
En el Perú, el cultivo de
tilapia aún no alcanza una escala comercial consolidada debido a limitaciones
técnicas asociadas a su histórica prohibición en 1991 (Resolución Ministerial
N° 277-99-PE); sin embargo, el impulso productivo de países vecinos ha
reactivado el interés de emprendimientos locales. A pesar de ello, persiste un
vacío de conocimiento sobre los requerimientos nutricio-nales específicos de
las cepas locales adaptadas al litoral peruano (Ng y Romano, 2013). Esta falta
de información y la escasa disponibilidad regional de piensos formulados para
la especie han propiciado el uso empírico de dietas para trucha arcoíris (Oncorhynchus
mykiss), dada su fácil comer-cialización. No obstante, los efectos
fisiológicos y económicos de emplear estos alimentos hiper-proteicos e
hiperlipídicos en sistemas de bajo recambio hídrico en el país aún no han sido
evaluados sistemáticamente.
Bajo este contexto,
el objetivo de la presente investigación fue evaluar el efecto de dos alimentos
comerciales con densidades nutricionales contras-tantes (alimento específico
para tilapia vs. alimento para trucha) sobre el rendimiento zootécnico, la
conversión alimenticia aparente y la eficiencia económica de juveniles
tempranos de Oreochromis niloticus cultivados en un sistema de bajo
recambio hídrico.
Ubicación
El estudio se realizó en el Laboratorio Costero del
Instituto del Mar del Perú (IMARPE), sede Carquín (11°05′31″S
77°37′42″O), provincia de Huaura, Lima. El área experimental
consistió en una estructura de 90 m² cubierta con malla raschel (95% de
sombra), proporcionando un ambiente controlado para el desarrollo del cultivo.
Material biológico y aclimatación
Se adquirieron 2,000 alevines de tilapia del Nilo (Oreochromis
niloticus) de 30 días de edad del Centro Acuícola "El Gran Paso"
(Tarapoto, San Martín). Los ejemplares fueron transportados por vía aérea y
terrestre en bolsas de polietileno con oxígeno suplementario durante un periodo
de 9 horas.
La aclimatación se realizó durante 30 días en tanques
de fibra de vidrio bajo condiciones controladas de temperatura (27,9 ± 1,8 °C).
Durante este periodo, se estabilizó el pH mediante mezclas progresivas de agua
local y se ajustó la temperatura gradualmente hasta alcanzar el rango de 28 a
30 °C, simulando las condiciones ambientales del área de estudio.
Sistema de cultivo y monitoreo de calidad de agua
El experimento se desarrolló en ocho tanques de fibra
de vidrio con un volumen útil de 490 L cada uno. El sistema operó bajo un
régimen de bajo recambio hídrico, con renovaciones semanales del 20% del
volumen total. El soporte técnico para mantener la calidad del agua incluyó
sedimentadores de sólidos, filtración mecánica y biológica, desinfección
mediante radiación ultravioleta (UV) y aireación constante provista por un
soplador de 2 HP.
El monitoreo térmico se realizó tres veces al día
(08:00, 12:00 y 16:00 h). Semanalmente, se determinó la concentración de
oxígeno disuelto mediante un oxímetro digital (YSI Pro20), mientras que los
niveles de pH y compuestos nitrogenados (nitrógeno amoniacal, nitrito y
nitrato) se evaluaron utilizando kits colorimétricos estándar. Los rangos de
referencia para la interpretación de la calidad del agua se basaron en lo
propuesto por Saldaña Escorcia et al. (2022) (Figura 1).
Diseño experimental y regímenes alimenticios
El experimento se extendió por 112 días (18 de enero al
10 de mayo de 2021). Se empleó un diseño completamente al azar (DCA) con dos
tratamientos y cuatro réplicas por tratamiento. Cada unidad experimental fue
sembrada con 100 peces de 56 días de edad. Los tratamientos consistieron en dos
dietas comerciales con densidades nutricionales contrastantes: T1 (alimento
para tilapia) y T2 (alimento para trucha).
El alimento se suministró manualmente cuatro veces al
día (10:00, 12:00, 14:00 y 16:00 h). La cantidad diaria de alimento asignada a
cada unidad experimental (Ración Diaria, RD) se calculó en función de la
biomasa total activa:
RD (g/día) = 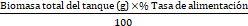
Donde la biomasa total del tanque se obtuvo
multiplicando el peso promedio individual (determinado en las biometrías) por
la población de peces vivos en cada réplica.
La tasa de alimentación se ajustó quincenalmente
recalculando la biomasa y aplicando porcentajes decrecientes del peso vivo
según las siguientes etapas de desarrollo por edad del pez:
·
Pre-inicio (60 a 96 días de edad): Tasa de alimentación del 10%
del peso vivo.
·
Inicio (97 a 120 días de edad): Tasa de alimentación del 8% del
peso vivo.
·
Crecimiento 1 (121 a 154 días de edad): Tasa de alimentación del
5% del peso vivo.
·
Crecimiento 2 (155 a 172 días de edad): Tasa de alimentación del
2,5% del peso vivo.
La composición química de los alimentos comerciales
utilizados se basó en la información técnica y el análisis declarado por la
empresa fabricante (AQUATECH). La composición nutri-cional declarada de los
piensos para cada etapa se presenta en la Tabla 1.
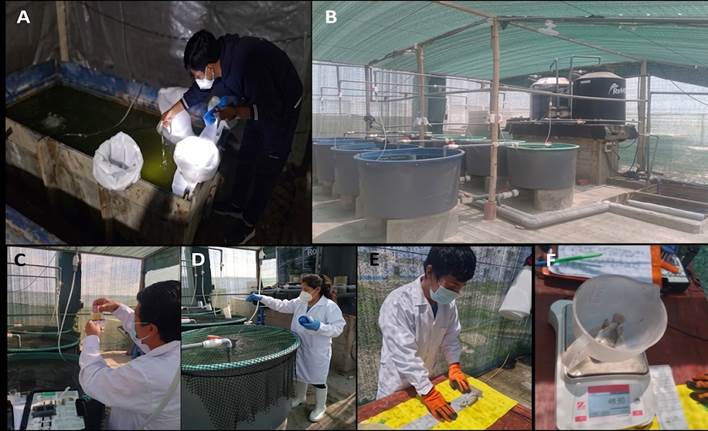
Figura 1. Secuencia
del proceso experimental con Oreochromis niloticus: A) Aclimatación de
alevines; B) Sistema de cultivo en tanques de fibra de vidrio de bajo recambio;
C) Evaluaciones de calidad de agua mediante kits colorimétricos; D)
Alimentación manual; E) Medición de longitud total en ictiómetro; F) Registro
de peso en balanza digital.
Tabla 1
Contenido nutricional del alimento evaluado según las
etapas de crecimiento
|
Nutriente
|
Alimento tilapia (T1)
|
|
Alimento trucha (T2)
|
|
Pre inicio
|
Inicio
|
Crec. 1
|
Crec. 2
|
|
Pre inicio
|
Inicio
|
Crec. 1 y 2
|
|
MS, %
|
88
|
88
|
88
|
88
|
|
88
|
88
|
88
|
|
ED, kcal/kg
|
3,6
|
3,1
|
3,0
|
2,9
|
|
3,8
|
3,8
|
3,6
|
|
Proteína, %
|
45
|
40
|
35
|
32
|
|
55
|
50
|
42
|
|
Grasa, %
|
7
|
5
|
5
|
4
|
|
12
|
12
|
15
|
|
Fibra, %
|
2,5
|
4
|
5
|
6
|
|
2,0
|
2,0
|
3,0
|
|
ELN, %
|
21,5
|
27
|
31
|
34
|
|
7
|
12
|
16
|
|
Calcio, %
|
1,6
|
1,2
|
1,0
|
0,8
|
|
1,2
|
1,2
|
1,2
|
|
Fosforo, %
|
1,0
|
0,8
|
0,7
|
0,6
|
|
1,5
|
1,5
|
0,7
|
Nota: Valores nutricionales correspondientes al
análisis e información garantizada declarada por la empresa fabricante
(AQUATECH) en el empaque de los alimentos comerciales utilizados.
MS: Materia seca; ED: Energía digestible estimada; ELN:
Extracto libre de nitrógeno.
Cada 28 días se realizó una biometría al 30% de los
peces de cada unidad experimental (previo ayuno de 12 h). Con el propósito de
minimizar el estrés por manipulación sin emplear anestésicos, los ejemplares
fueron capturados y procesados individualmente con rapidez fuera del agua
(tiempo de exposición menor a 30 segundos) utilizando toallas húmedas para
proteger la mucosa cutánea. Se registró el peso corporal (±0,1 g) mediante una
balanza digital analítica (OHAUS, precisión ±0,01 g) y la longitud total (±0,1
cm) con un ictiómetro digital, reincorporando de inmediato a los peces a sus
respectivos tanques con aireación constante.
Índices de desempeño y análisis de datos
Se determinaron los siguientes indicadores:
Ganancia de peso = (Peso
final – peso inicial) / días
Consumo de alimento = Consumo
total (g) / número de peces
Conversión alimenticia
aparente = Ganancia de peso total / Consumo de alimento total
El beneficio neto se calculó como la diferencia entre
los ingresos por ganancia de peso (precio de venta) y los costos variables
(alevines y alimento total). La normalidad de los datos fue validada y se
aplicó la prueba t de Student para muestras independientes utilizando el
software R.
Los parámetros fisicoquímicos registrados durante
los 112 días de experimentación se presentan en la Tabla 2. La temperatura (25
a 29 °C) y el pH (7,2 a 7,9) permanecieron dentro de los niveles óptimos para
el desarrollo de la especie. Pese al régimen de bajo recambio hídrico, el
oxígeno disuelto se mantuvo en niveles de saturación (7,6 a 7,9 mg/L) gracias
al sistema de aireación constante. Los com-puestos nitrogenados exhibieron una
tendencia acumulativa, alcanzando concentraciones máximas de 1,90 mg/L de
nitrito y 200 mg/L de nitrato; no obstante, estos valores no excedieron los
rangos de tolerancia reportados para O. niloticus (Saldaña Escorcia et
al., 2022).
Tabla 2
Parámetros físicos y químicos de cultivo de alevines de
tilapia
|
Parámetro
|
Rango*
|
Durante el estudio
|
|
Mínimo
|
Máximo
|
|
Temperatura, °C
|
20 a 42
|
25
|
29
|
|
Oxígeno
disuelto, mg/L
|
1,6 a > 9
|
7,6
|
7,9
|
|
pH
|
5 a 11
|
7,2
|
7,9
|
|
Nitrito, mg/L
|
0 a 5
|
0,01
|
1,90
|
|
Nitrato, mg/L
|
0 a 300
|
15
|
200
|
* Según Saldaña Escorcia et al. (2022).
La estabilidad de los indicadores fisicoquímicos
registrados (Tabla 2) ratifica que el sistema de bajo recambio hídrico
proporcionó un entorno adecuado para el cultivo, manteniendo la temperatura y
el pH en rangos óptimos para el metabolismo de O. niloticus. La notable
tolerancia medioambiental de esta especie, factor determinante de su éxito
biológico y potencial invasivo (Zhang et al., 2022), le permitió adaptarse a la
acumulación progresiva de compuestos nitrogenados. Aunque el sistema favoreció
el incremento de nitritos y nitratos, las concentraciones finales se
mantuvieron bajo los umbrales de seguridad críticos para la tilapia en etapas
de crecimiento (Saldaña Escorcia et al., 2022), validando la viabilidad técnica
de este modelo de producción bajo las condiciones del litoral costero.
El crecimiento en términos de peso corporal y
longitud de O. niloticus durante los 112 días de experimentación se
presenta en la Figura 2. Se observaron diferencias estadísticas significativas
(p < 0,05) a favor del tratamiento con alimento para trucha (T2), el cual
mostró una tendencia superior en el peso corporal (Figura 2A) y una longitud
consistentemente mayor (Figura 2B) a lo largo del estudio.
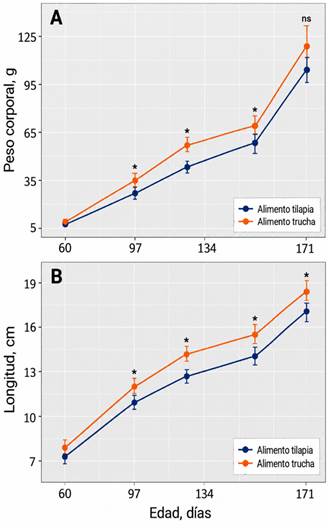
Figura 2. Peso corporal (A) y longitud (B) de O.
niloticus en crecimiento alimentadas con dos tipos de alimento comercial.
El asterisco indica diferencias estadísticas significativas.
Los parámetros zootécnicos finales se detallan en
la Tabla 3. Al finalizar el periodo evaluado, la sobrevivencia fue elevada en ambos
tratamientos (97,0 ± 3,0% en T1 y 98,0 ± 2,0% en T2; p=0,32), confirmando la
inocuidad de las dietas y el adecuado manejo. Se registraron diferencias
significativas (p < 0,05) en la longitud final, el consumo total de alimento
y la conversión alimenticia aparente. Sin embargo, el peso corporal final (p =
0,13) y la ganancia diaria de peso (p = 0,16) no mostraron diferencias
estadísticamente significativas, a pesar de la superioridad numérica de T2.
Aunque la dieta para trucha (T2) promovió
una mayor longitud final (18,3 ± 0,6 cm vs. 17,0 ± 0,4 cm en T1; p=0,01), no
generó diferencias significativas en peso final (116,8 ± 13,7 g vs. 102,8 ± 7,8
g; p = 0,13) ni en ganancia diaria (0,968 g/d vs. 0,855 g/d; p = 0,16) (Tabla
3). En contraste, la conversión alimenticia aparente (FCR) fue
significativamente superior en T1 (0,72 ± 0,04) frente a T2 (0,87 ± 0,06; p
< 0,01) (Tabla 3). Ambos FCR resultan inferiores al rango convencional de
1,2 a 1,8 reportado en agua clara para O. niloticus (Ng & Romano,
2013; Novodworski et al., 2024). Esta elevada eficiencia se debe al mayor
aprovechamiento proteico en juveniles tempranos (Meurer et al., 2025) y,
principalmente, a la productividad primaria endógena (perifiton, bioflóculo
incipiente y microalgas) favorecida por el bajo recambio hídrico (Savonitto et
al., 2021). Esta biomasa natural actuó como alimento suple-mentario,
sustituyendo parcialmente el consumo de pellets y subestimando el FCR aparente
(Savonitto et al., 2021; Meurer et al., 2025).
La ingesta de todos los nutrientes evaluados
presentó diferencias estadísticas significativas (p < 0.01) entre los
tratamientos (Tabla 4). El mayor consumo voluntario registrado en las tilapias
alimentadas con dieta para trucha (T2) se tradujo en una ingesta superior de
energía digestible (ED), proteína cruda, grasa, calcio y fósforo. Por el
contrario, los ejemplares del tratamiento T1 (alimento para tilapia) mostraron
una ingesta significativamente mayor de fibra cruda y extracto libre de
nitrógeno (ELN) en comparación con el grupo T2.
Aunque los teleósteos suelen incrementar el
consumo para compensar dietas de baja densidad energética (Mebratu et al.,
2023), T1 registró un consumo total significativamente menor (68,3 ± 1,9 g vs.
94,3 ± 10,6 g en T2; p < 0,01) (Tabla 3). Esto indica que el nivel de fibra
en T1 (5,0 - 6,0% declarada; 3,1 ± 0,1 g ingerida) superó el umbral fisiológico
de tolerancia para juveniles de O. niloticus, estimado entre 3% y 5% (Ng
& Romano, 2013; Lansakara et al., 2024). Superado este umbral, los
polisacáridos no almidonosos ejercen un efecto antinutricional que causa
llenado mecánico y distensión gástrica, acelerando el tránsito intestinal y
reduciendo la digestibilidad de la materia seca (Bonvini et al., 2018; Mebratu
et al., 2023). Por ello, la fibra en T1 actuó como un limitante físico que
provocó saciedad mecánica, inhibiendo la ingesta voluntaria antes de satisfacer
los requerimientos energéticos de los peces (Bonvini et al., 2018).
La dieta para trucha (T2), rica en proteína (42% – 55% PC) y lípidos (12% – 15% grasa) (Tabla 1),
estimuló un mayor consumo voluntario que resultó en una ingesta de proteína
cruda 70,8% superior (43,4 ± 4,7 g vs. 25,4 ± 0,7 g; p < 0,01) y un consumo
de energía digestible 62,1% mayor (347 ± 39 kcal vs. 214 ± 6 kcal; p < 0,01)
respecto a T1 (Tabla 4). No obstante, este exceso calórico y proteico no
incrementó de forma significativa el peso final (p = 0,13) ni la ganancia
diaria (p = 0,16) (Tabla 3). Fisiológicamente, cuando el consumo proteico
excede el requerimiento ontogenético, el exceso de aminoácidos se cataboliza
mediante desaminación hepática para obtener energía o sintetizar lípidos en
lugar de depositar masa muscular (Haidar et al., 2018; Hardy & Kaushik,
2021). Este proceso genera un alto costo bioenergético por la síntesis y excreción
del nitrógeno amoniacal resultante, explicando por qué una mayor ingesta de
proteína no mejoró el rendimiento ponderal (Hardy & Kaushik, 2021;
Novodworski et al., 2024). Asimismo, la elevada ingesta de grasa en T2 (11,0 ±
1,4 g vs. 3,3 ± 0,2 g; p < 0,01) pudo inducir una acumulación lipídica
visceral y hepática anormal que satura la capacidad metabólica del hígado
(Zhang et al., 2023). Por el contrario, la dieta T1 promovió una utilización
más eficiente de los nutrientes que, sumada al aprovechamiento de la
productividad primaria natural del sistema, justifica la obtención de una
conversión alimenticia aparente superior (0,72 ± 0,04) (Savonitto et al.,
2021).
Tabla 3
Parámetros zootécnicos de O. niloticus alimentadas
con dos dietas comerciales
|
Parámetros
|
Alimento de tilapia (T1)
|
Alimento de trucha (T2)
|
Probabilidad
|
|
Peso corporal inicio, g
|
6,95 ± 0,36
|
8,17 ± 0,90
|
|
|
Peso corporal final, g
|
102,8 ± 7,8 a
|
116,8 ± 13,7 a
|
0,13
|
|
Ganancia de peso, g/d
|
0,855 ± 0,07 a
|
0,968 ± 0,12 a
|
0,16
|
|
Longitud inicial, cm
|
7,13 ± 0,15
|
7,65 ± 0,30
|
|
|
Longitud final, cm
|
17,0 ± 0,4 b
|
18,3 ± 0,6 a
|
0,01
|
|
Consumo de alimento total, g
|
68,3 ± 1,90 b
|
94,29 ± 10,59 a
|
< 0,01
|
|
Conversión alimenticia
|
0,72 ± 0,04 a
|
0,87 ± 0,06 b
|
< 0,01
|
|
Sobrevivencia, %
|
97,0
|
98,0
|
0,32
|
Tabla 4
Ingesta de nutrientes de O. niloticus (60 a 172
días de edad) alimentadas con dos dietas comerciales
|
Nutriente
|
Alimento de tilapia (T1)
|
Alimento de trucha (T2)
|
Probabilidad
|
|
ED, kcal
|
214 ± 6b
|
347 ± 39a
|
< 0,01
|
|
Proteína cruda, g
|
25,4 ± 0,7b
|
43,4 ± 4,7a
|
< 0,01
|
|
Grasa cruda, g
|
3,3 ± 0,2b
|
11,0 ± 1,4ª
|
< 0,01
|
|
Fibra cruda, g
|
3,1 ± 0,1a
|
2,5 ± 0,3b
|
< 0,01
|
|
ELN, g
|
19,9 ± 0,6 a
|
12,9 ± 1,6 b
|
< 0,01
|
|
Calcio, g
|
0,75 ± 0,02b
|
1,13 ± 0,13ª
|
< 0,01
|
|
Fosforo, g
|
0,51 ± 0,01b
|
0,96 ± 0,09a
|
< 0,01
|
Los indicadores económicos revelaron diferencias
críticas entre los tratamientos (Tabla 5). El tratamiento con alimento para
trucha (T2) alcanzó apenas el 64% de la eficiencia económica obtenida con la dieta
específica para tilapia (T1) (Tabla 5). Este resultado se atribuye a un
incremento combinado en los costos operativos: por un lado, una mayor tasa de
ingestión voluntaria en el grupo T2 y, por otro, el elevado valor comercial de
dicha dieta, formulada con insumos de alta densidad proteica y lipídica.
Finalmente, la marcada disparidad en la eficiencia
económica relativa demuestra que el uso de dietas diseñadas para salmónidos
resulta contrapro-ducente en el engorde de O. niloticus. Aunque el
alimento para trucha se caracteriza por una mayor densidad nutricional, su uso
elevó el costo de alimentación en un 71% (0,24$ USD vs 0,14 USD) sin generar un
retorno proporcional en biomasa. Dado que el alimento balanceado es el rubro
más crítico en los costos variables totales, el suministro de una dieta que
proporciona un exceso de nutrientes conlleva hacia una ineficiencia meta-bólica
(desaminación de proteína por exceso de disponibilidad) (Moraes et al., 2016),
traducién-dose en una disminución del margen del beneficio neto (0,06 USD en T2
frente a 0,11 USD en T1).
Tabla 5
Eficiencia económica relativa del alimento de
tilapias en crecimiento alimentadas con dos tipos de alimento comercial
|
Parámetros
económicos
|
Alimento de tilapia (T1)
|
Alimento de trucha (T2)
|
|
Ingresos brutos
|
|
|
|
Ganancia de peso total, g
|
96
|
109
|
|
Precio por kg (USD/kg)*
|
4,05
|
4,05
|
|
Ingreso total por pez (USD)
|
0,39
|
0,44
|
|
Costos variables
|
|
|
|
Costo Alevín (USD)
|
0,14
|
0,14
|
|
Costo de alimentación (USD)
|
0,14
|
0,24
|
|
Costo variable total (USD)
|
0,28
|
0,38
|
|
Análisis de rentabilidad
|
|
|
|
Beneficio neto por pez (USD)
|
0,11
|
0,06
|
|
Eficiencia económica
relativa (%)
|
100
|
64
|
*Tasa de cambio: 1 USD = 3,70 PEN.
Desde una perspectiva
aplicativa, se debe rechazar el uso de dietas comerciales hiperproteicas
formuladas para trucha en el engorde de O. niloticus en sistemas de bajo
recambio hídrico, debido a su marcada ineficiencia económica y falta de
beneficio en el rendimiento ponderal. En su lugar, las estrategias de nutrición
acuícola en estos entornos deben aprovechar la productividad primaria endógena
(perifiton y bioflóculo incipiente) como un complemento natural de alta calidad
que optimiza la conversión alimenticia y reduce los costos operativos.
Finalmente, se recomienda evaluar el umbral óptimo de fibra dietaria en la
etapa de juvenil temprano para evitar efectos de saciedad física, así como
validar estos hallazgos en sistemas productivos comerciales a mayor escala.
Este
estudio fue financiado por la Universidad Nacional José Faustino Sánchez
Carrión (UNJFSC) bajo el Concurso de Proyectos de Investigación para Docentes
2020 – Recursos Ordinarios, según la Resolución Vicerrectoral
N°009-2020-VRI-UNJFSC del Vicerrectorado de Investigación.
REFERENCIAS
BIBLIOGRÁFICAS
Bonvini, E., Bonaldo, A.,
Parma, L., Mandrioli, L., Sirri, R., Grandi, M., & Gatta, P. P. (2018). Feeding European
sea bass with increasing dietary fibre levels: Impact on growth, blood
biochemistry, gut histology, gut evacuation. Aquaculture, 494,
1–9. https://doi.org/10.1016/j.aquaculture.2018.05.017
Haidar, M. N., Bleeker, S.,
Heinsbroek, L. T. N., & Schrama, J. W. (2018). Effect of constant
digestible protein intake and varying digestible energy levels on energy and
protein utilization in Nile tilapia. Aquaculture, 489, 28–35. https://doi.org/10.1016/j.aquaculture.2017.12.035
Hardy, R. W., &
Kaushik, S. J. (Eds.). (2021). Fish nutrition. Academic Press.
Hu, R., Li, S., Diao, H.,
Huang, C., Yan, J., Wei, X., Zhou, M., He, P., Wang, T., Fu, H., Zhong, C.,
Mao, C., Wang, Y., Kuang, S., & Tang, W. (2023). The interaction between
dietary fiber and gut microbiota, and its effect on pig intestinal health. Frontiers
in Immunology, 14, Art. 1095740. https://doi.org/10.3389/fimmu.2023.1095740
Lansakara, L. H. M. P. R.,
Kodithuwakku, S. P., Himali, S. M. C., & Vidanarachchi, J. K. (2024).
Effects of supplementation of insoluble dietary fiber obtained from cinnamon
spent bark waste on the performance of Nile tilapia (Oreochromis niloticus)
fingerlings. Tropical Agricultural Research, 35(2). https://doi.org/10.4038/tar.v35i2.8744
Mebratu, A. T.,
Vanhandsaeme, L., Asfaw, Y. T., Merckx, W., & Janssens, G. P. J. (2023).
Exploring fibrous ingredients for fish: The case of feeding sugar beet pulp to
tambaquí (Colossoma macropomum). Heliyon, 9(12), Artículo
e22682. https://doi.org/10.1016/j.heliyon.2023.e22682
Meurer, F., Novodworski,
J., & Bombardelli, R. A. (2025). Protein requirements in Nile tilapia
(Oreochromis niloticus) during production and reproduction phases. Aquaculture and
Fisheries,
10(2), 171-182. https://doi.org/10.1016/j.aaf.2024.03.00
Moraes, M. A. B., Carmo, C.
F., Tabata, Y. A., Vaz-Dos-Santos, A. M., & Mercante, C. T. J. (2016). Environmental
indicators in effluent assessment of rainbow trout (Oncorhynchus mykiss)
reared in raceway system through phosphorus and nitrogen. Brazilian Journal
of Biology, 76(4), 1021–1028. https://doi.org/10.1590/1519-6984.07315
Ng, W. K., & Romano, N.
(2013). A review of the nutrition and feeding management of farmed tilapia
throughout the culture cycle. Reviews in Aquaculture, 5(4),
220–254.
Novodworski, J., Matos, É.
J. A., Gonçalves, R. M., Bombardelli, R. A., & Meurer, F. (2024). Protein
requirements of fattening Nile tilapia (Oreochromis niloticus) fed fish
meal-free diets. Aquaculture Journal, 4(3), 135–147. https://doi.org/10.3390/aquacj4030010
Nunes, L. J. L., da Silva
Campos, C. V. F., da Silva, S. M. B. C., Gálvez, A. O., Brito, L. O., & dos
Santos, J. F. (2024). The culture of Nile tilapia (Oreochromis
niloticus) juvenile at different culture technologies: Autotrophic,
bioflocs and synbiotic. Aquaculture, 588, Art. 740912. https://doi.org/10.1016/j.aquaculture.2024.740912
Peng, D., Li, Y. X., Dong,
L. X., Cheng, K., Wen, H., Tian, J., ... Jiang, M. (2024). Dietary iodine can
effectively alleviate the adverse effects of fermented rapeseed meal on the
growth, liver health, and antioxidant capacity of tilapia (GIFT, Oreochromis
niloticus). Fishes, 9(12), Art. 501. https://doi.org/10.3390/fishes9120501
Ragasa, C., Osei-Mensah, Y.
O., & Amewu, S. (2022). Impact of fish feed formulation training on feed
use and farmers' income: Evidence from Ghana. Aquaculture, 558,
Art. 738378. https://doi.org/10.1016/j.aquaculture.2022.738378
Saldaña Escorcia, R.,
Salazar Sánchez, M., Rodríguez Barbosa, L., Hernández Martínez, I., &
Sánchez Álvarez, N. (2022). Calidad del agua para el cultivo de tilapia roja (Oreochromis
sp.) en etapa de alevinaje con tecnología biofloc. Avances en Investigación,
52, 289–301.
Savonitto, G., Barkan, R.,
Harpaz, S., Neori, A., Chernova, H., Terlizzi, A., & Guttman, L. (2021). Fishmeal
replacement by periphyton reduces the fish in fish out ratio and alimentation
cost in gilthead sea bream Sparus aurata. Scientific Reports, 11(1),
Artículo 20990. https://doi.org/10.1038/s41598-021-00466-5
Wang, J., Fu, Z., Qiao, H.,
& Liu, F. (2019). Assessment of eutrophication and water quality in the
estuarine area of Lake Wuli, Lake Taihu, China. Science of the Total
Environment, 650, 1392–1402. https://doi.org/10.1016/j.scitotenv.2018.09.137
Zhang, L., Mei, X., Tang,
Y., Razlutskij, V., Peterka, J., Taylor, W. D., ... & Zhang, X. (2022). Effects
of Nile tilapia (Oreochromis niloticus) on phytoplankton community
structure and water quality: A short-term mesocosm study. Knowledge &
Management of Aquatic Ecosystems, (423), Art. 11. https://doi.org/10.1051/kmae/2022009
Zhang, Y., Guo, F., Yang,
X., Liu, Y., Bao, Y., Wang, Z., Hu, Z., & Zhou, Q. (2023). Insights into
the mechanism of growth and fat deposition by feeding different levels of lipid
provided by transcriptome analysis of swamp eel (Monopterus albus)
liver. Frontiers
in Immunology,
14, Art. 1118198. https://doi.org/10.3389/fimmu.2023.1118198