Caracterización morfológica y molecular de Aspergillus spp. con potencial aflatoxigénico en maíz dentado
Morphological and molecular characterization of Aspergillus spp. with aflatoxigenic potential in dent corn
Junior Russbell Urbina-Terrones1*; Lucía Luz Angélica Ramírez-Gordillo1; Christian Esteban Paredes-Gil1; Guillermo Juan Cox-Trigoso1; Karen Daphne Calvay-Sánchez1; Juan Héctor Wilson-Krugg1
1 Universidad Nacional de Trujillo, Trujillo, Perú.
* Autor corresponsal: jrurbinat@unitru.edu.pe (J. R Urbina-Terrones).
ORCID de los autores:
J. R Urbina-Terrones https://orcid.org/0009-0008-2326-8372
L. L. A. Ramírez-Gordillo https://orcid.org/0009-0001-4748-452X
C. E. Paredes-Gil https://orcid.org/0009-0000-7216-300X
G. J. Cox-Trigoso https://orcid.org/0000-0002-9793-3311
K. D. Calvay-Sánchez https://orcid.org/0000-0002-0438-9602
J. H. Wilson-Krugg https://orcid.org/0000-0003-1695-3001
RESUMEN
La contaminación por especies de Aspergillus con potencial aflatoxigénico en granos de Zea mays L. var. indentata (“maíz dentado”) representa un riesgo sanitario y productivo. El presente estudio tuvo como objetivo caracterizar morfológica y molecularmente aislamientos de Aspergillus spp. con potencial aflatoxigénico obtenidos de maíz dentado comercializado en el mercado La Hermelinda (Trujillo, Perú). Se analizaron 55 muestras de granos recolectadas entre septiembre y octubre de 2023. El aislamiento se realizó mediante siembra en agar papa dextrosa, seguida de la evaluación cualitativa de la aflatoxigenicidad en agar coco bajo luz UV (365 nm). Los aislamientos positivos fueron caracterizados en agar extracto de malta, obteniéndose nueve aislamientos con potencial aflatoxigénico; de los cuales se seleccionaron cinco mediante agrupamiento morfológico para su análisis genético a través de la amplificación y secuenciación de las regiones ITS y β-tubulina. identificándose molecularmente como Aspergillus flavus (n=2), Aspergillus westerdijkiae, Aspergillus ochraceus y Aspergillus occultus, con coberturas de alineamiento entre 97% – 100%, valores de E-value de 0,0 y porcentajes de identidad entre 98,34% – 100%. La presencia en el maíz de La Libertad, Perú, de Aspergillus spp. con potencial aflatoxigénico como A. flavus, así como especies de Aspergillus productoras de ocratoxinas y otras micotoxinas representa un riesgo toxicológico para la salud humana y animal, evidenciando que el peligro de contaminación micotoxigénica en los alimentos es constante, por lo que se requiere una vigilancia continua para detectar su presencia.
Palabras clave: Aspergillus; aflatoxinas; Zea mays var. indentata; Medio Agar Coco; potencial aflatoxigénico.
ABSTRACT
Contamination by Aspergillus species with aflatoxigenic potential in grains of Zea mays L. var. indentata (“dent corn”) represents a health and production risk. The present study aimed to morphologically and molecularly characterize isolates of Aspergillus spp. with aflatoxigenic potential obtained from dent corn commercialized at the La Hermelinda market (Trujillo, Peru). A total of 55 grain samples collected between September and October 2023 were analyzed. Isolation was performed by plating on potato dextrose agar, followed by qualitative evaluation of aflatoxigenicity on coconut agar under UV light (365 nm). Positive isolates were characterized by malt extract agar, yielding nine isolates with aflatoxigenic potential, five of which were selected through morphological clustering for genetic analysis via amplification and sequencing of the ITS and β-tubulin regions. Molecular identification revealed Aspergillus flavus (n=2), Aspergillus westerdijkiae, Aspergillus ochraceus, and Aspergillus occultus, with alignment coverages between 97% – 100%, E-values of 0.0, and identity percentages between 98.34% – 100%. The presence in corn from La Libertad, Peru, of Aspergillus spp. with aflatoxigenic potential such as A. flavus, as well as Aspergillus species producing ochratoxins and other mycotoxins, represents a toxicological risk to human and animal health, demonstrating that the danger of mycotoxigenic contamination in food is continuous and requires constant monitoring to detect its presence.
Keywords: Aspergillus; aflatoxins; Zea mays var. indentata; coconut agar medium; aflatoxigenic potential.
Recibido: 22-07-2026.
Aceptado: 02-10-2026.
![]() |
INTRODUCCIÓN
A nivel global, el maíz constituye el segundo cultivo alimentario de mayor producción, después del trigo (Neupane et al., 2022). Este cereal se clasifica taxonómica y comercialmente según la composi-ción del endospermo y la morfología del grano. Dentro de esta diversidad, Zea mays L. var. indentata («maíz dentado») destaca por su amplia utilización en la industria de alimentos balan-ceados para la avicultura, un uso sustentado en su elevado contenido de betacaroteno y en las propiedades fisicoquímicas de su endospermo (Barandiarán, 2020).
En el Perú, el maíz dentado, comprendido mayoritariamente bajo la categoría comercial de maíz amarillo duro, representa un rubro de alta relevancia económica y productiva. En los últimos reportes, se registró una superficie sembrada aproximada de 303958 hectáreas (MINAGRI, 2025) y una producción nacional de 1324700 toneladas (BCRP, 2026). En este periodo, la región La Libertad se consolidó como el principal núcleo productivo, al concentrar la mayor superficie cultivada con 14764 hectáreas (GRLL, 2025).
Esta relevancia productiva ha mantenido una tendencia de expansión en la dinámica agrícola reciente. De acuerdo con el Ministerio de Desarrollo Agrario y Riego (MIDAGRI, 2026b), durante la campaña 2025/2026, las áreas sembradas de maíz amarillo duro y maíz choclo registraron un incremento del 3,3% y 3,7%, respectivamente, en comparación con el periodo 2024/2025. Asimismo, la producción nacional consolidada alcanzó las 856000 toneladas distribuidas en 233 mil hectáreas pertenecientes a 20 departamentos (MIDAGRI, 2026a). Así, el cultivo de maíz se reafirma como un pilar estratégico de la agricultura nacional, integrando desde el valor sociocultural del maíz amiláceo hasta la sostenibilidad económica del sector avícola (MIDAGRI, 2026a).
Sin embargo, el volumen de producción y el almacenamiento masivo demandados por esta cadena agroindustrial exponen al grano a severos riesgos fitosanitarios. En este escenario, la contaminación del maíz dentado por micotoxinas representa una amenaza crítica tanto en el ámbito económico como en la salud humana y animal. Estos metabolitos secundarios son sintetizados principalmente por hongos de los géneros Fusarium, Alternaria, Penicillium y Aspergillus en etapas de precosecha y poscosecha (Křížová et al., 2021; Leite et al., 2021). Hasta el año 2021 se habían descrito aproximadamente 400 tipos de micotoxinas (Evtugyn et al., 2021), entre las que figuran, por la gravedad de sus efectos toxico-lógicos, las fumonisinas, zearalenonas, toxinas T-2 y HT-2, ocratoxinas y aflatoxinas (Romero et al., 2022).
En particular, las aflatoxinas generan un impacto económico considerable en la industria del maíz; se estima que su contaminación ocasiona pérdidas que oscilan entre 1,68 y 52,1 millones de dólares estadounidenses (Jiang et al., 2021). Desde el punto de vista sanitario, están clasificadas como agentes carcinogénicos y se asocian con efectos muta-génicos, citotóxicos, hepatotóxicos, teratogénicos e inmunosupresores (Marchese et al., 2018; Evtugyn et al., 2021; Beredea G., 2026). De los 14 tipos identificados, las aflatoxinas B1, B2, G1 y G2 presentan la mayor relevancia toxicológica debido a su elevada frecuencia de detección en cultivos alimentarios y su mayor riesgo para la salud humana y animal (Kinyenje et al., 2023).
Los brotes de aflatoxicosis se han asociado con diversos factores de riesgo, entre ellos altas temperaturas y precipitaciones, así como prácticas inadecuadas de almacenamiento y deficiencias en la higiene de los alimentos, condiciones que favorecen el crecimiento de especies del género Aspergillus (Falade et al., 2022). Este género cosmopolita puede desarrollarse en una amplia variedad de sustratos y presenta importancia sanitaria debido a la capacidad de varias de sus especies para producir aflatoxinas (Navale et al., 2021; Shabeer et al., 2022). Actualmente, se han descrito aproximadamente 428 especies dentro de Aspergillus, agrupadas en 20 secciones taxonómicas (Sánchez et al., 2021).
Los estudios específicos sobre micotoxinas y los hongos que las producen en el maíz dentado en la región de La Libertad son escasos o no se tienen investigaciones científicas publicadas. Al respecto es importante señalar que la información más actual que se tiene sobre micotoxinas en la región La Libertad la publicó la Autoridad Nacional en materia de sanidad agraria en el Perú, el cual menciona en su informe (SENASA, 2025a) que, de 143 informes de evaluaciones de muestras de maíz amarillo duro destinadas a ingredientes para piensos, 80 cumplieron con los estándares (incluyendo las muestras de La Libertad), mientras que el 44,06% (63 informes) superó el límite máximo permisible (LMP). Entre los casos de incumplimiento, se reportan la presencia de aflatoxina B1 en 10 informes (6,99%), fumonisina B1 + fumonisina B2 en 59 (41,26%), fumonisina B1 en 48 (33,57%) y fumonisina B2 en 12 (8,39%), y ausencia de deoxynivalenol (DON). Cabe resaltar que, aunque el plan anual de monitoreo estipulaba la evaluación de aflatoxina B1, DON, fumonisinas, ocratoxina A y zearalenona (SENASA, 2025b), en el informe final solo se presentaron resultados para las tres primeras. El incremento en la incidencia de estas micotoxinas como contaminantes de piensos entre los años 2024 y 2025 se atribuye, principalmente, a condiciones inadecuadas de almacenamiento poscosecha, características del sustrato y daños físicos en el cultivo (SENASA, 2025a). Asimismo, como precedente de investigaciones sobre aflatoxinas en alimentos en el Perú, podemos mencionar que Rojas Jaimes et al. (2021) investigaron la presencia de aflatoxinas en alimentos no procesados, mediante el uso del kit Veratox for Total Aflatoxin®. Los autores detectaron un nivel de 33.2 ppb de aflatoxinas en muestras de maíz mote (Zea mays) comercializadas en el mercado Edén del distrito de San Borja.
El maíz dentado (Zea mays var. indentata) es particularmente susceptible a la colonización por especies de Aspergillus con potencial aflatoxi-génico; una vulnerabilidad que se agrava debido a las condiciones climáticas y los factores de almacenamiento que favorecen su proliferación. Aunque el mercado La Hermelinda en la ciudad de Trujillo constituye el principal centro de distribución de este cereal por su gran extensión, la información epidemiológica y sanitaria actualizada sobre la presencia de estas cepas fúngicas a nivel nacional es aún escasa. Frente a este vacío de conocimiento, el presente estudio adquiere relevancia científica al constituir el primer reporte en la región La Libertad que emplea caracterización molecular para identificar a Aspergillus potenciales productores de aflatoxinas con presencia en el maíz dentado. Por ello, el objetivo de esta investigación fue identificar especies de Aspergillus con potencial aflatoxigénico aisladas de este cereal comercializado en el mencionado mercado.
METODOLOGÍA
Recolección de muestra
El muestreo para el aislamiento de Aspergillus spp. con potencial aflatoxigénico se realizó en puestos del mercado de abastos La Hermelinda (Trujillo, La Libertad, Perú). Se obtuvieron 55 muestras de puestos que comercializaban Zea mays L. var. indentata (maíz dentado) a granel entre septiembre y octubre de 2023. De cada puesto se recolectaron 500 g de granos, destinados principalmente a la alimentación de aves, aunque no se descarta su uso para consumo humano. Las muestras fueron colocadas en bolsas herméticas de primer uso (González et al., 2022; Ghaemmaghami, 2020) y transportadas para su procesamiento, en un tiempo no mayor de dos horas, al Laboratorio de Fitopatología del Departamento Académico de Microbiología y Parasitología de la Universidad Nacional de Trujillo.
Aislamiento de Aspergillus spp.
El procedimiento se realizó de manera indepen-diente para cada muestra. Previamente, la muestra se homogeneizó, se pesó empleando una balanza de precisión (Sartorius Mod. ENTRIS323-1S, Alemania) y se agregaron 10 g de granos de Zea mays L. var. indentata en 90 mL de Tween 80 al 0,1%, obteniéndose diluciones hasta 10⁻⁴. Posteriormente, se realizó la siembra por extensión en superficie por triplicado a partir de las diluciones 10⁻², 10⁻³ y 10⁻⁴ en agar papa dextrosa (PDA) (Monda et al., 2020; Ajmal et al., 2022), suplementado con ácido láctico para inhibir el crecimiento bacteriano, alcanzando un pH final de 5,2. Las placas se incubaron a 28 °C durante 3 – 4 días (Khan et al., 2020; Dooso et al., 2019).
Selección y conservación de cultivos de Aspergillus sp.
Tras el período de incubación, se evaluaron las características macroscópicas de las colonias desarrolladas en agar papa dextrosa, incluyendo color del anverso y reverso, aspecto, presencia de exudados y diámetro. La identificación micros-cópica se realizó mediante preparación en fresco con azul de lactofenol, observándose estructuras como vesículas, conidios y la disposición de las fiálides, de acuerdo con los criterios morfológicos descritos para especies de Aspergillus (Palacios et al., 2022; Okayo et al., 2020; Thathana et al., 2017). Los aislamientos que presentaron concordancia con dichas características fueron subcultivados por punción en tubos con PDA inclinado e incubados a 28 °C durante 4–5 días (Khan et al., 2020).
Evaluación cualitativa de especies de Aspergillus aflatoxigénicas
De cada aislamiento se realizó una siembra por cuatriplicado por punción en agar coco (CAM) y se incubó a 28 °C, pH 7, durante tres días (Davis et al., 1987). Finalizado el período de incubación, las placas se evaluaron en una cámara oscura bajo luz ultravioleta (365 nm) empleando una linterna UV (ALONEFIRE, Mod. E007, China). Al momento de la exposición se registraron los aislamientos que presentaron de forma inmediata un halo o anillo fluorescente azul o azul verdoso, considerándose potencialmente aflatoxigénicos mediante esta técnica cualitativa (Ghaemmaghami et al., 2020; Weaver et al., 2022).
Análisis morfológico de Aspergillus sp. seleccionadas
Los aislamientos de Aspergillus con potencial aflatoxigénico se agruparon según sus características morfológicas (conidióforo, vesícula, conidios, fiálides, métulas) observadas mediante un microscopio trinocular (ZEISS, Mod. Primostar 3, Alemania) evaluadas mediante la técnica de microcultivo en agar extracto de malta (MEA), tras tres días de incubación a 28 °C (Palacios et al., 2022). Asimismo, las características macroscópicas (color de colonia, tipo de crecimiento, y presencia de esclerocios) se registraron a partir de cultivos obtenidos en MEA en placa incubados durante siete días a 28 °C. Los rasgos microscópicos observados se compararon con los criterios establecidos en claves taxonómicas para la diferenciación de especies de Aspergillus sp. (Moura et al., 2023), los cultivos que tuvieron características macroscópicas y microscópicas correspondientes a una misma especie según las claves taxonómicas (mismo morfotipo) se agruparon y se seleccionó un cultivo representativo para su posterior identificación molecular.
Identificación molecular de Aspergillus sp.
La identificación molecular de las cepas clasificadas como Aspergillus sp. con potencial aflatoxigénico se realizó a partir de cultivos puros, empleándose un kit comercial de extracción de ADN (Presto™ Mini gDNA Yeast Kit, Geneaid Biotech Ltd., Taiwán), siguiendo las instrucciones del fabricante.
Posteriormente, se amplificaron marcadores mole-culares mediante reacción en cadena de la polimerasa (PCR), empleando cebadores específi-cos dirigidos a la región del Espaciador Transcrito Interno (ITS) o al gen de la β-tubulina (Tabla 1). Las reacciones se realizaron con la enzima PCRBIO HiFi Polymerase (PCR Biosystems Ltd., Reino Unido), siguiendo las recomendaciones del fabricante.
Tabla 1
Secuencia nucleotídica de cebadores dirigidos a la región del Espaciador Transcrito Interno (ITS) o al gen β-tubulina
|
Región |
Cebador |
Secuencia (5’-3’) |
|
ITS |
ITS1-F |
TCCGTAGGTGAACCTGCGG |
|
ITS4-R |
TCCTCCGCTTATTGATATGC |
|
|
β-tubulina |
Bt2a |
GGTAACCAAATCGGTGCTGCTTTC |
|
Bt2b |
ACCCTCAGTGTAGTGACCCTTGGC |
Los amplicones obtenidos fueron purificados utilizando el GenepHlow Gel/PCR Kit (Geneaid, Taiwán), conforme al protocolo del proveedor. Finalmente, los productos purificados se sometieron a secuenciación por el método de Sanger, a través del servicio externo de Sangon Biotech (Shanghai) Co., Ltd. (China).
Las secuencias nucleotídicas obtenidas con los cebadores directo y reverso fueron ensambladas para generar secuencias consenso por muestra. Las secuencias consenso resultantes se analizaron mediante el algoritmo BLASTn del National Center for Biotechnology Information (NCBI) para su comparación con secuencias depositadas en bases de datos públicas.
Análisis de datos
Se realizó el análisis de datos utilizando el programa estadístico IBM SPSS Statistics v.25.0. Se determinó la frecuencia relativa y el porcentaje de prevalencia (%) para cuantificar la abundancia de Aspergillus sp. y se identificó la proporción de aislamientos con potencial aflatoxigénico frente a los no toxigénicos en el maíz dentado.
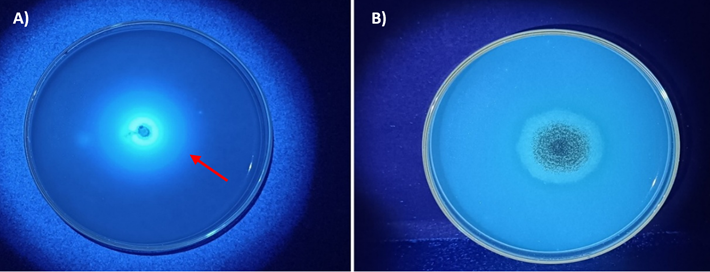
De las 55 muestras de granos de Zea mays var. indentata evaluadas, el 45,5% (n = 25) presentó contaminación por Aspergillus spp, a partir de las cuales se obtuvieron 34 aislamientos (Tabla 2). Mediante la prueba cualitativa en medio de agar de coco, se identificaron nueve aislados con potencial aflatoxigénico (Figura 1), los cuales fueron clasificados en cinco morfotipos con base en sus características macroscópicas y microscópicas (Tablas 3 y 4; Figuras 2, 3 y 4) y se seleccionó un cultivo representativo de cada morfotipo para su identificación molecular (Tabla 5). Los resultados revelaron que los aislamientos MT08-A y MT37-A correspondían a Aspergillus flavus, el MT42-A a Aspergillus occultus, el MT30-A a Aspergillus ochraceus y el MT25-A a Aspergillus westerdijkiae.
Se evidenció una alta prevalencia de contaminación por Aspergillus spp. (45,5%; n = 25) en las 55 muestras evaluadas de granos de maíz dentado (Zea mays var. indentata). Esta considerable incidencia resalta la alta susceptibilidad del maíz a la colonización por hongos toxigénicos en la cadena agroalimentaria, un hallazgo que concuerda con investigaciones previas (Mvogo Nyebe et al., 2025). La presencia de Aspergillus en muestras de maíz ha sido asociada a prácticas deficientes de manipu-lación y tratamiento poscosecha, tanto en campo como durante el almacenamiento, siendo las condiciones inadecuadas de este último el principal factor de riesgo para su proliferación (Goko et al., 2021; Martínez et al., 2013).
Tabla 2
Frecuencia y prevalencia de Aspergillus spp. y su potencial aflatoxigénico, presentes en muestras de granos de Zea mays var. indentata
|
Criterio de evaluación |
Total evaluado (N) |
Casos positivos (n) |
Frecuencia relativa (Fr) |
Prevalencia (%) |
|
Contaminación de muestras por Aspergillus spp. |
55 |
25 |
0,4545 |
45,45 |
|
Potencial aflatoxigénico en aislamientos recuperados |
34 |
9 |
0,2647 |
26,47 |

Figura 1. Evaluación cualitativa de Aspergillus sp. con potencial aflatoxigénico en medio agar coco, expuestos a luz UV (365 nm) en condiciones de oscuridad y registrados al instante de exposición. A) Presencia de halo azul (flecha) correspondiente a Aspergillus con potencial aflatoxigénico; B) Ausencia de halo azul para Aspergillus no aflatoxigénico.
Tabla 3
Características macroscópicas de los
cultivos de Aspergillus sp. con potencial aflatoxigénico aislados de Zea
mays L. var. indentata procedentes del mercado de abastos La Hermelinda,
Trujillo - Perú
|
Código de Cultivo |
Potencial producción de aflatoxinas* |
Características Macroscópicas |
||
|
Color |
Esclerocios |
Tipo de crecimiento |
||
|
MT02-A |
Positivo |
Verde |
Ausentes |
No restringido |
|
MT08-A |
Positivo |
Verde |
Ausentes |
No restringido |
|
MT25-A |
Positivo |
Amarillo-ocre |
Morados- rosados |
No restringido |
|
MT30-A |
Positivo |
Amarillo |
Ausentes |
No restringido |
|
MT30-B |
Positivo |
Verde |
Negros-café |
No restringido |
|
MT36-A |
Positivo |
Verde |
Negros-café |
No restringido |
|
MT37-A |
Positivo |
Verde |
Negros-café |
No restringido |
|
MT42-A |
Positivo |
Marrón |
Ausentes |
Restringido |
|
MT43-B |
Positivo |
Verde |
Negros-café |
No restringido |
MT: Número de muestra de Zea mays.
*: Presencia de fluorecencia azul o azul verdoso mediante prueba cualitativa con luz UV (315mm)
A o B: Cultivo con diferentes características macroscópicas provenientes de la misma muestra.
Tabla 4
Características microscópicas de los cultivos de Aspergillus sp. con potencial aflatoxigénico aislados de granos de Zea mays L. var. indentata procedentes del mercado de abastos La Hermelinda, Trujillo, Perú
|
Código de Cultivo |
Características Microscópicas |
|||||||||||||
|
Conidióforo |
Vesícula |
Conidios |
Fiálides |
Métulas |
||||||||||
|
Diámetro (µm) |
Textura |
Forma |
Diámetro (µm) |
Color |
Forma |
Diámetro (µm) |
Textura |
Distribución |
Tipo |
Diámetro (µm) |
Cobertura |
Diámetro (µm) |
Cobertura |
|
|
MT02-A |
93,73 |
Ligeramente rugoso |
Subglobosa |
8,61 |
Verde amarillento |
Globosos |
3,04 |
Rugoso |
Columnar |
Uniseriada |
5,70 |
1/2 |
- |
- |
|
MT08-A |
86,63 |
Ligeramente rugoso |
Subglobosa |
10,10 |
Verde amarillento |
Globosos |
3,61 |
Rugoso |
Columnar |
Uniseriada |
5,45 |
1/2 |
- |
- |
|
MT25-A |
316,27 |
Rugoso - Equinulado |
Globosa |
17,57 |
Amarillo |
Globosos |
2,13 |
Rugoso |
Radial |
Biseriada |
3,26 |
Total |
4,39 |
Total |
|
MT30-A |
270,34 |
Rugoso |
Globosa |
14,24 |
Amarillo anaranjado |
Globosos |
2,47 |
Rugoso |
Radial |
Biseriada |
7,55 |
Total |
9,94 |
Total |
|
MT30-B |
147,83 |
Liso |
Globosa |
15,24 |
Verde oscuro |
Globosos |
3,36 |
Rugoso - Equinulado |
Radial |
Uniseriada |
5,79 |
3/4 |
- |
- |
|
MT36-A |
157,99 |
Liso |
Globosa |
11,42 |
Verde oscuro |
Globosos |
3,42 |
Rugoso - Equinulado |
Radial |
Uniseriada |
5,46 |
3/4 |
- |
- |
|
MT37-A |
163,44 |
Liso |
Globosa |
13,55 |
Verde oscuro |
Globosos |
3,53 |
Rugoso - Equinulado |
Radial |
Uniseriada |
6,29 |
3/4 |
- |
- |
|
MT42-A |
255,21 |
Liso |
Globosa |
17,34 |
Ladrillo |
Globosos |
2,48 |
Rugoso - Liso |
Radial |
Biseriada |
4,86 |
Total |
5,39 |
Total |
|
MT43-B |
162,08 |
Liso |
Globosa |
12,61 |
Verde oscuro |
Globosos |
3,53 |
Rugoso - Equinulado |
Radial |
Uniseriada |
6,33 |
3/4 |
- |
- |
MT: Número de muestras de granos de Zea mays L. var. indentata.
A o B: Cultivo con diferentes características macroscópicas provenientes de la misma muestra.
(-): Ausencia de estructura.

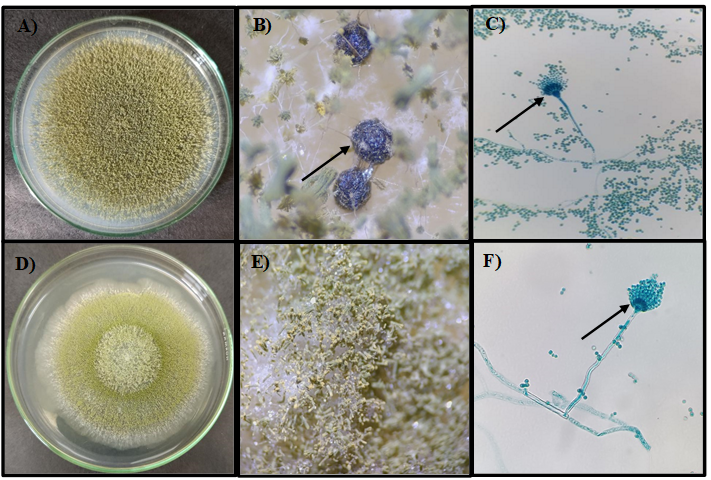
Figura 2. Morfología de dos grupos de Aspergillus sp. (colonias verde-amarillas) en agar MEA (7 días, 28 °C). Grupo 1: A) Macroscopía de la colonia; B) Esclerocios (flecha) y cabezas conidiales; C) Vesícula globosa uniseriada con ¾ de cobertura de fiálides (flecha). Grupo 2: D) Macroscopía de la colonia; E) Cabezas conidiales; F) Vesícula globosa uniseriada con ½ de cobertura de fiálides (flecha).

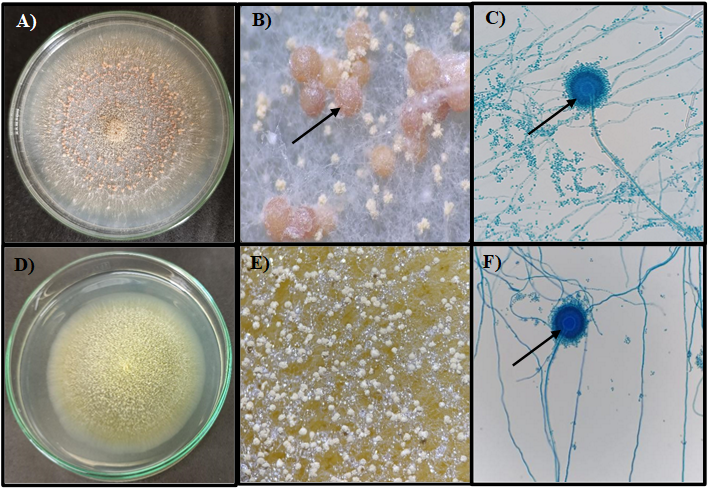
Figura 3. Morfología de dos grupos de Aspergillus sp. (colonias amarillo-anaranjadas) en agar MEA (7 días, 28 °C). Grupo 3: A) Macroscopía de la colonia; B) Esclerocios (flecha) y cabezas conidiales; C) Vesícula globosa biseriada con cobertura total de fiálides (flecha). Grupo 4: D) Macroscopía de la colonia; E) Cabezas conidiales; F) Vesícula globosa biseriada con cobertura total de fiálides (flecha).

Figura 4. Morfología de Aspergillus sp. (colonia de color marrón) en agar MEA (7 días, 28 °C). Grupo 5: A) Macroscopía de la colonia; B) Cabezas conidiales; C) Vesícula globosa biseriada con cobertura total de fiálides (flecha).
Tabla 5
Análisis de similitud nucleotídica para la asignación taxonómica de los aislados de Aspergillus sp.
|
Código cultivo |
Número de accesión de muestra |
Especie asignada |
Cobertura |
E- value* |
Porcentaje de identidad |
Número de accesión de referencia** |
|
MT08-A |
QB130689 |
Aspergillus flavus |
100% |
0,0 |
100,00% |
|
|
MT25-A |
QB134071 |
Aspergillus westerdijkiae |
100% |
0,0 |
98,34% |
OQ198004.1 |
|
MT30-A |
QB130690 |
Aspergillus ochraceus |
97% |
0,0 |
99,31% |
|
|
MT37-A |
QB134072 |
Aspergillus flavus |
100% |
0,0 |
99,59% |
|
|
MT42-A |
QB134073 |
Aspergillus occultus |
100% |
0,0 |
100,00% |
* Expectation value (significancia estadística del alineamiento). **Accesión de referencia: Código de secuencia de referencia depositado en GenBank/NCBI utilizado para la identificación taxonómica mediante la herramienta BLAST.
La capacidad de los cultivos aislados para producir aflatoxinas se evaluó mediante una prueba cualitativa de tamizaje en medio agar coco (CAM). Se consideraron positivos aquellos aislamientos que presentaron un halo fluorescente azul alrededor de la colonia tras la exposición a luz ultravioleta de 365 nm (Figura 1). Bajo este criterio, se identificó que nueve cultivos (26,47%) presentaron potencial aflatoxigénico: MT02-A, MT08-A, MT25-A, MT30-A, MT30-B, MT36-A, MT37-A, MT42-A y MT43-B. Este hallazgo representa una alerta directa para la seguridad alimentaria, ya que la exposición a aflatoxinas genera graves impactos toxicológicos y constituye una enorme carga de morbilidad a nivel mundial (Bereda, 2026). Estrategias similares basadas en la fluorescencia en medios derivados de coco han sido empleadas con éxito para identificar cultivos aflatoxigénicos aislados de mazorcas y suelos (Khan et al., 2020).
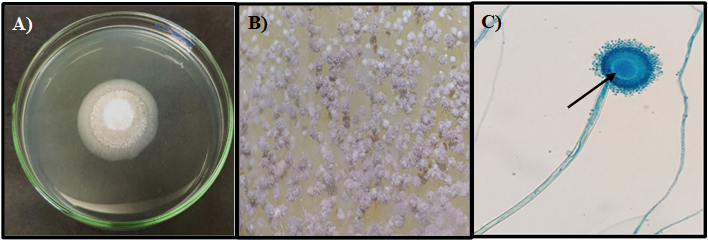
Los aislamientos toxigénicos se analizaron morfo-lógicamente a nivel macro y microscópico (Tablas 3 y 4), lo que permitió agruparlos en cinco morfotipos distintos. El primer grupo, conformado por colonias verdes con vesícula globosa y presencia de esclerocios, incluyó a MT30-B, MT36-A, MT37-A y MT43-B (Figura 2, A-C); el segundo grupo (MT02-A y MT08-A) presentó características similares, pero con ausencia de esclerocios (Figura 2, D-F). El tercer grupo (MT25-A) se caracterizó por colonias amarillo-naranja, biseriación y presencia de esclerocios (Figura 3, A-C), mientras que el cuarto (MT30-A) fue semejante al tercero, pero sin esclerocios (Figura 3, D-F). Finalmente, el quinto morfotipo (MT42-A) evidenció un crecimiento restringido, pigmentación marrón y ausencia de esclerocios (Figura 4). Sin embargo, diversos autores advierten que la identificación basada únicamente en la morfología es insuficiente debido a la profunda complejidad genotípica de estos hongos (Djenontin et al., 2023; Silva et al., 2022).
Por ello, la posterior identificación molecular mediante secuenciamiento Sanger de un cultivo representativo por cada morfotipo demostró ser un paso decisivo. Todas las secuencias presentaron coberturas altas (entre 97% y 100%) y valores de E-value de 0,0 (Tabla 5). Los resultados confir-maron la presencia de Aspergillus flavus (MT08-A por ITS y MT37-A por β-tubulina), una de las especies predominantes de la sección Flavi en la contaminación de granos (Mvogo Nyebe et al., 2025). Además de A. flavus, el análisis reveló la presencia de Aspergillus occultus (MT42-A, β-tubulina), Aspergillus ochraceus (MT30-A, ITS) y Aspergillus westerdijkiae (MT25-A, β-tubulina). Aunque la región ITS es el código de barras universal para hongos, en Aspergillus puede no discriminar adecuadamente especies estrecha-mente relacionadas, por lo que genes proteicos como la β-tubulina ofrecen mayor poder resolutivo. Para fortalecer la delimitación taxonómica en futu-ros estudios, se recomienda un enfoque multilocus (Lücking et al., 2020) que permita, además, com-prender mejor los genotipos ligados a la biosíntesis de aflatoxinas (Mvogo Nyebe et al., 2025).
La diversidad de especies toxigénicas identificadas resulta de particular interés ecológico y toxicológico. En otros estudios se ha reportado una alta prevalencia de especies como A. flavus y A. parasiticus en muestras de maíz (Moura et al., 2023; Rahimi et al., 2021). Mientras que A. flavus es el principal responsable de la producción de aflatoxinas, especies como A. westerdijkiae, A. ochraceus y A. occultus son reconocidas principalmente por su capacidad de sintetizar ocratoxina A (OTA) (Bousta et al., 2025; Visagie et al., 2014; Wang et al., 2023). La convergencia de hongos con el potencial de producir aflatoxinas y OTA en una misma matriz subraya una dinámica compleja que podría derivar en la coocurrencia de múltiples micotoxinas. Este fenómeno sinérgico exacerba drásticamente el impacto toxicológico en los consumidores humanos y animales, justificando la necesidad de adoptar estrategias de control integral (Nazareth et al., 2024). Asimismo, la presencia de cepas como Aspergillus aflatoxiformans en cereales representa un riesgo adicional crítico por su capacidad para producir aflatoxinas de los tipos B y G (Singh et al., 2020).
Finalmente, aunque la prueba cualitativa fluorescente en medio CAM demostró ser un método de tamizaje rápido, se han reportado discrepancias al comparar estos ensayos preliminares con técnicas cuantitativas. Un estudio que comparó pruebas cualitativas con cromatografía líquida de alta eficiencia (HPLC) evidenció una subestimación de las cepas toxigénicas cuando solo se emplean métodos visuales (Aziz et al., 2021). Si bien existen alternativas como los métodos inmunoquímicos (ELISA), estos presentan limitaciones asociadas a su costo, sensibilidad y especificidad (Alshannaq et al., 2017). Por consiguiente, se recomienda la combinación de métodos cualitativos con métodos confirmatorios para una identificación robusta, tal como se ha aplicado exitosamente validando la fluorescencia con cromatografía en capa fina (Saber et al., 2016). Como sugieren Agriopoulou et al. (2020) y Bereda (2026), es necesario e incluso debe ser considerado una prioridad absoluta el desarrollo de métodos sensibles, fiables y a un costo accesible.
CONCLUSIONES
Se obtuvieron nueve aislamientos de Aspergillus spp. con potencial aflatoxigenico en muestras de granos de Zea mays var. indentata expendidos en el mercado de abastos La Hermelinda. Mediante identificación molecular se confirmó la asignación a las especies Aspergillus flavus, Aspergillus westerdijkiae, Aspergillus ochraceus y Aspergillus occultus.
Entre las especies identificadas, A. flavus es reconocida por su potencial aflatoxigénico, lo que representa un riesgo para la salud animal y humana debido a la posible contaminación del maíz con aflatoxinas. La presencia de estas especies en granos comercializados sugiere condiciones inadecuadas de almacenamiento, manipulación y control sanitario, que favorecen el desarrollo de hongos toxigénicos.
Es importante señalar que A. westerdijkiae, A. ochraceus y A. occultus no son consideradas tradicionalmente como productoras de aflatoxinas, aunque algunas de ellas están asociadas a la producción de otras micotoxinas relevantes (por ejemplo, ocratoxina A). Por ello, se recomienda complementar la identificación molecular con la evaluación directa de la producción de micotoxinas mediante métodos cromatográficos (como HPLC o LC-MS/MS) o inmunoquímicos (ELISA), a fin de confirmar la capacidad toxigénica de los aislamientos y estimar el riesgo real para la salud pública.
Asimismo, resulta necesario realizar estudios complementarios de confirmación y cuantificación cromatográfica para validar de manera precisa la presencia de micotoxinas producidas por los Aspergillus sp. aislados. Se sugiere, además, estructurar e implementar esquemas de muestreo representativos a nivel regional en diferentes centros de acopio y mercados de abastos, lo que permitirá dimensionar la prevalencia del hongo, evaluar la heterogeneidad del riesgo en la cadena de comercialización y fundamentar programas integrales de vigilancia epidemiológica y control sanitario del maíz.
AGRADECIMIENTOS
Esta investigación fue realizada gracias a la “VIII Convocatoria de Proyectos de Ciencia y Tecnología en la Universidad Nacional de Trujillo con recursos públicos provenientes del CANON”
DECLARACIÓN DE CONFLICTO DE INTERÉS
Los autores manifiestan que no existen conflictos de interés en este estudio.
REFERENCIAS BIBLIOGRÁFICAS
Agriopoulou, S., Stamatelopoulou, E., & Varzakas, T. (2020). Advances in Analysis and Detection of Major Mycotoxins in Foods. Foods, 9(4), 518. https://doi.org/10.3390/foods9040518
Ajmal, M., Alshannaq, A., Moon, H., Choi, D., Akram, A., & Nayyar, B. G. (2022). Characterization of 260 isolates of Aspergillus section Flavi obtained from sesame seeds in Punjab, Pakistan. Toxins, 14(2), Article 117. https://doi.org/10.3390/toxins14020117
Alshannaq, A., & Yu, J.-H. (2017). Occurrence, toxicity, and analysis of major mycotoxins in food. International Journal of Environmental Research and Public Health, 14(6), Article 632. https://doi.org/10.3390/ijerph14060632
Aziz, A., Shehata, S. M., Hisham, S. M., & Alobathani, A. A. (2021). Molecular profile of aflatoxigenic and non-aflatoxigenic isolates of Aspergillus flavus isolated from stored maize. Saudi Journal of Biological Sciences, 28(2), 1383–1391. https://doi.org/10.1016/j.sjbs.2020.11.073
Barandiarán, M. (2020). Manual técnico de cultivo de maíz amarillo duro. Instituto Nacional de Innovación Agraria.
Bereda, G. (2026). Aflatoxin exposure and health impacts: Global burden and advances in detection technologies. Genes and Environment, 48(1), 14. https://doi.org/10.1186/s41021-026-00363-1
Bousta, A., Astati, S., Wahby, I., Fidah, A., Janah, T., Rahouti, M., & Rhazi, L. (2025). Vapour-phase effects of thyme and eucalyptus oils, alone and combined, against toxin-producing fungi from stored durum wheat. Scientific Reports, 15(1), Article 45684. https://doi.org/10.1038/s41598-025-21379-7
Davis, N. D., Iyer, S. K., & Diener, U. L. (1987). Improved method of screening for aflatoxin with a coconut agar medium. Applied and Environmental Microbiology, 53(7), 1593–1595. https://doi.org/10.1128/aem.53.7.1593-1595.1987
Djenontin, E., Costa, J. M., Mousavi, B., Nguyen, L. D. N., Guillot, J., Delhaes, L., Botterel, F., & Dannaoui, E. (2023). The Molecular Identification and Antifungal Susceptibility of Clinical Isolates of Aspergillus Section Flavi from Three French Hospitals. Microorganisms, 11(10), 2429. https://doi.org/10.3390/microorganisms11102429
Dooso, R., Okoth, S., Wachira, P., Mutiga, S., Ochieng, P., & Kago, L. (2019). Genetic profiling of Aspergillus isolates with varying aflatoxin production potential from different maize-growing regions of Kenya. Toxins, 11(8), Article 467. https://doi.org/10.3390/toxins1108467
Evtugyn, G., Porfireva, A., Kulikova, T., & Hianik, T. (2021). Recent achievements in electrochemical and surface plasmon resonance aptasensors for mycotoxins detection. Chemosensors, 9(7), Article 180. https://doi.org/10.3390/chemosensors9070180
Falade, T. D. O., Neya, A., Bonkoungou, S., Dagno, K., Basso, A., Senghor, A., Atehnkeng, J., Ortega-Beltran, A., & Bandyopadhyay, R. (2022). Aflatoxin contamination of maize, groundnut, and sorghum grown in Burkina Faso, Mali, and Niger and aflatoxin exposure assessment. Toxins, 14(10), Article 700. https://doi.org/10.3390/toxins1410700
Ghaemmaghami, S., Pashootan, N., & Razzaghi-Abyaneh, M. (2020). Toxigenicity and phylogeny of Aspergillus section Flavi in poultry feed in Iran. Current Medical Mycology, 6(1), 22–29. https://doi.org/10.18502/cmm.6.1.2504
Goko, M., Murimwa, K., Gasura, E., Rugare, J., & Ngadze, E. (2021). Identification and characterisation of seed-borne fungal pathogens associated with maize (Zea mays L.). International Journal of Microbiology, 2021, Article 6702856. https://doi.org/10.1155/2021/6702856
González, J., Ferreiroa, V., Rodríguez, I., Alfonso, A., Sainz, M. J., & Aguín, O. (2022). Occurrence of mycotoxins and mycotoxi-genic fungi in silage from the north of Portugal at feed-out. International Journal of Food Microbiology, 365, Art. 109556. https://doi.org/10.1016/j.ijfoodmicro.2022.109556
Jiang, Y., Ogunade, I. M., Vyas, D., & Adesogan, A. T. (2021). Aflatoxin in dairy cows: Toxicity, occurrence in feedstuffs and milk and dietary mitigation strategies. Toxins, 13(4), Article 283. https://doi.org/10.3390/toxins13040283
Khan, R., Mohamad Ghazali, F., Mahyudin, N., & Samsudin, N. (2020). Morphological characterization and determination of aflatoxigenic and non-aflatoxigenic Aspergillus flavus isolated from sweet corn kernels and soil in Malaysia. Agriculture, 10, Article 450. https://doi.org/10.3390/agriculture10100450
Kinyenje, E., Kishimba, R., Mohamed, M., Mwafulango, A., Eliakimu, E., & Kwesigabo, G. (2023). Aflatoxicosis outbreak and its associated factors in Kiteto, Chemba and Kondoa Districts, Tanzania. PLOS Global Public Health, 3(8), Article e0002191. https://doi.org/10.1371/journal.pgph.0002191
Křížová, L., Dadáková, K., Dvořáčková, M., & Kašparovský, T. (2021). Feedborne mycotoxins beauvericin and enniatins and livestock animals. Toxins, 13(1), Article 32. https://doi.org/10.3390/toxins13010032
Leite, M., Freitas, A., Sanches, A., Barbosa, J., & Ramos, F. (2021). Maize food chain and mycotoxins: A review on occurrence studies. Trends in Food Science & Technology, 115, 307–331. https://doi.org/10.1016/j.tifs.2021.06.045
Lücking, R., Aime, M. C., Robbertse, B., Miller, A. N., Ariyawansa, H. A., Aoki, T., Cardinali, G., Crous, P. W., Druzhinina, I. S., Geiser, D. M., Hawksworth, D. L., Hyde, K. D., Irinyi, L., Jeewon, R., Johnston, P. R., Kirk, P. M., Malosso, E., May, T. W., Meyer, W., ... Schoch, C. L. (2020). Unambiguous identification of fungi: Where do we stand and how accurate and precise is fungal DNA barcoding? IMA Fungus, 11(1), Article 14. https://doi.org/10.1186/s43008-020-00033-z
Marchese, S., Polo, A., Ariano, A., Velotto, S., Costantini, S., & Severino, L. (2018). Aflatoxin B1 and M1: Biological properties and their involvement in cancer development. Toxins, 10(6), Article 214. https://doi.org/10.3390/toxins10060214
Martínez, H., Hernández, S., Reyes, C., & Vázquez, G. (2013). El género Aspergillus y sus micotoxinas en maíz en México: Problemática y perspectivas. Revista Mexicana de Fitopatología, 31(2), 126–146.
Monda, E., Masanga, J., & Alakonya, A. (2020). Variation in occurrence and aflatoxigenicity of Aspergillus flavus from two climatically varied regions in Kenya. Toxins, 12(1), Article 34. https://doi.org/10.3390/toxins12010034
Moura, J., Cazal, C., Rojas, C., Ferreira, F., Pérez, P., Dias, N., Godoy, P., Costa, J., Santos, C., & Arrua, A. (2023). Species identification and mycotoxigenic potential of Aspergillus section Flavi isolated from maize marketed in the Metropolitan Region of Asunción, Paraguay. Microorganisms, 11(8), Article 1879. https://doi.org/10.3390/microorganisms11081879
Mvogo Nyebe, R. A., Kumar, A., Ngonkeu Mangaptche, E. L., Kumar, S., Velmurugan, S., Krishnappa, C., Kundu, A., Djuikwo, V., Joshi, D., Gogoi, R., & Fokou, E. (2025). Multi-omics characterization of aflatoxigenic Aspergillus from grains and rhizosphere of maize across agroecological zones of Cameroon. Scientific Reports, 15(1), 18407.
Navale, V., Vamkudoth, K., Ajmera, S., & Dhuri, V. (2021). Aspergillus derived mycotoxins in food and the environment: Prevalence, detection, and toxicity. Toxicology Reports, 8, 1008–1030. https://doi.org/10.1016/j.toxrep.2021.04.013
Nazareth, T. de M., Soriano Pérez, E., Luz, C., Meca, G., & Quiles, J. M. (2024). Comprehensive review of aflatoxin and ochratoxin A dynamics: Emergence, toxicological impact, and advanced control strategies. Foods, 13(12), 1920. https://doi.org/10.3390/foods13121920
Neupane, D., Adhikari, P., Bhattarai, D., Rana, B., Ahmed, Z., Sharma, U., & Adhikari, D. (2022). Does climate change affect the yield of the top three cereals and food security in the world? Earth, 3(1), 45–71. https://doi.org/10.3390/earth3010004
Okayo, R., Andika, D., Dida, M., K'Otuto, G., & Gichimu, B. (2020). Morphological and molecular characterization of toxigenic Aspergillus flavus from groundnut kernels in Kenya. International Journal of Microbiology, 2020, Article 8854718. https://doi.org/10.1155/2020/8854718
Palacios, H., Stefanello, A., García, M. S., Castro, D. A., Garcia, M. V., & Vásquez, W. A. (2022). Relationship between the fungal incidence, water activity, humidity, and aflatoxin content in maize samples from the highlands and coast of Ecuador. Toxins, 14(3), Article 196. https://doi.org/10.3390/toxins14030196
Rahimi, A., Sasani, E., Rezaie, S., Soltan-Dallal, M. M., Mahmoudi, S., Ahmadi, A., Ghaffari, M., Aala, F., & Khodavaisy, S. (2021). Molecular identification of aflatoxigenic Aspergillus species in dried nuts and grains collected from Tehran, Iran. Journal of Environmental Health Science and Engineering, 19(2), 1839–1846. https://doi.org/10.1007/s40201-021-00734-6
Rojas Jaimes, J., Chacón-Cruzado, M., Castañeda-Peláez, L., & Díaz-Tello, A. (2021). Cuantificación de aflatoxinas carcinogénicas en alimentos no procesados y su implicación para el consumo en Lima, Perú. Nutrición Hospitalaria, 38(1), 146–151. https://doi.org/10.20960/nh.03240
Romero-Sánchez, I., Ramírez-García, L., Gracia-Lor, E., & Madrid-Albarrán, Y. (2022). Simultaneous determination of aflatoxins B1, B2, G1 and G2 in commercial rices using immunoaffinity column clean-up and HPLC-MS/MS. Food Chemistry, 395, Article 133611. https://doi.org/10.1016/j.foodchem.2022.133611
Saber, S. M., Youssef, M. S., Arafa, R. F., & Hassane, A. M. A. (2016). Mycotoxins production by Aspergillus ostianus Wehmer and using phytochemicals as control agent. Journal of Scientific and Engineering Research, 3(2), 198–213.
Servicio Nacional de Sanidad Agraria. (2025a). Informe de resultados del monitoreo de residuos químicos y otros contaminantes en alimentos agropecuarios primarios y piensos 2025. Ministerio de Desarrollo Agrario y Riego. Perú.
Servicio Nacional de Sanidad Agraria. (2025b). Plan anual de monitoreo de residuos químicos y otros contaminantes en alimentos agropecuarios primarios y piensos 2025. Ministerio de Desarrollo Agrario y Riego. Perú.
Shabeer, S., Asad, S., Jamal, A., & Ali, A. (2022). Aflatoxin contamination, its impact and management strategies: An updated review. Toxins, 14(5), Article 307. https://doi.org/10.3390/toxins14050307
Silva, J. J., Fungaro, M. H. P., Wang, X., Larsen, T. O., Frisvad, J. C., Taniwaki, M. H., & Iamanaka, B. T. (2022). Deep Genotypic Species Delimitation of Aspergillus Section Flavi Isolated from Brazilian Foodstuffs and the Description of Aspergillus annui sp. nov. and Aspergillus saccharicola sp. nov. Journal of fungi, 8(12), 1279. https://doi.org/10.3390/jof8121279
Singh, P., Mehl, H. L., Orbach, M. J., Callicott, K. A., & Cotty, P. J. (2020). Phenotypic differentiation of two morphologically similar aflatoxin-producing fungi from West Africa. Toxins, 12(10), Article 656. https://doi.org/10.3390/toxins12100656
Sánchez, K., Almaguer, M., Duarte, E., Rojas, T., Guadalupe, M., & Reyes, M. (2021). Phylogenetic identification, diversity, and richness of Aspergillus from homes in Havana, Cuba. Microorganisms, 9(1), Article 115. https://doi.org/10.3390/microorganisms9010115
Thathana, M., Murage, H., Abia, A. L. K., & Pillay, M. (2017). Morphological characterization and determination of aflatoxin-production potentials of Aspergillus flavus isolated from maize and soil in Kenya. Agriculture, 7(10), Article 80. https://doi.org/10.3390/agriculture7100080
Visagie, C. M., Varga, J., Houbraken, J., Meijer, M., Kocsubé, S., Yilmaz, N., Fotedar, R., Seifert, K. A., Frisvad, J. C., & Samson, R. A. (2014). Ochratoxin production and taxonomy of the yellow aspergilli (Aspergillus section Circumdati). Studies in Mycology, 78, 1–61. https://doi.org/10.1016/j.simyco.2014.07.001
Wang, Y., Liu, F., Pei, J., Yan, H., & Wang, Y. (2023). The AwHog1 transcription factor influences the osmotic stress response, mycelium growth, OTA production, and pathogenicity in Aspergillus westerdijkiae fc-1. Toxins, 15(7), Article 432. https://doi.org/10.3390/toxins15070432
Weaver, M. A., Callicott, K. A., Mehl, H. L., Opoku, J., Park, L. C., & Fields, K. S. (2022). Characterization of the Aspergillus flavus population from highly aflatoxin-contaminated corn in the United States. Toxins, 14(11), Article 755. https://doi.org/10.3390/toxins14110755