 |
INTRODUCCIÓN
Saberes ancestrales en riesgo: El tomate silvestre (Solanum spp.) en las cuencas de Lima, Perú
Ancestral knowledge at risk: Wild tomato (Solanum spp.) in the basins of Lima, Peru
José Arnaldo Collantes Hidalgo1; Anhid Lilian Benavente Chero1, 2, 3; María Cristina Castro Cerón1;
Victor Tomas Lluque Chochabot1; Robert Richard Cucho Flores1, 2 ,3; Obert Marín-Sánchez1, 2, 3 *
1 Grupo de Investigación Bioprospección en Salud y Metagenómica Ambiental – BIOPROSGEN. Universidad Nacional Tecnológica de Lima Sur, Villa El Salvador, Lima Perú.
2 Programa de Maestría en Biotecnología y Gestión Ambiental. Universidad Nacional Tecnológica de Lima Sur. Ciudad Universitaria, Villa El Salvador, Lima, Perú.
3 Laboratorio de Investigación “Evaluación Ambiental y Diversidad Biológica” (EVADIB). Universidad Nacional Tecnológica de Lima Sur. Villa El Salvador, Lima, Perú.
* Autor corresponsal: omarins@untels.edu.pe (O. Marín-Sánchez).
ORCID de los autores:
J. A. Collantes Hidalgo: https://orcid.org/0000-0001-8029-1546 A. L. Benavente Chero: https://orcid.org/0000-0002-2350-6448
M. C. Castro Cerón: https://orcid.org/0000-0001-8565-9573 V. T. Lluque Chochabot: https://orcid.org/0000-0002-6955-009X
R. R. Cucho Flores: https://orcid.org/0000-0001-6413-0638 O. Marín-Sánchez: https://orcid.org/0000-0003-2912-1191
RESUMEN
El objetivo fue estimar la prevalencia, la estructura territorial y las amenazas percibidas del conocimiento local sobre el tomate silvestre (Solanum spp.) en las cuencas de los ríos Rímac, Chillón y Lurín (Lima, Perú). Se aplicó una encuesta semiestructurada a 100 adultos en 11 puntos de muestreo de 10 distritos de las provincias de Canta y Huarochirí, mediante muestreo no probabilístico intencional con cadena de referencias. Se estimó la prevalencia del reconocimiento de la especie, se evaluaron sus asociaciones con prueba exacta de Fisher, V de Cramér y regresión logística penalizada de Firth, se construyó un Índice de Conocimiento Etnobotánico (ICE, 0–5) para medir la profundidad del saber entre quienes reconocen la especie, y se exploró la estructura de los perfiles de conocimiento mediante Análisis de Correspondencias Múltiples (MCA). El 42% reconoció la especie, pero solo el 21% la había usado alguna vez. El reconocimiento no se asoció con el sexo, la edad, la ocupación ni el tiempo de residencia, y sí con la localidad (V de Cramér = 0,51) y la cuenca (Rímac 62,1%; Lurín 56,7%; Chillón 17,1%). Se observó una disociación entre prevalencia y profundidad: Antioquía concentró el mayor número de portadores con el ICE más bajo (1,3), mientras que Huaros tuvo pocos portadores con el ICE máximo (5,0). El MCA mostró superposición de los perfiles femenino y masculino (31,9% de inercia en dos dimensiones). El 54,8% de los portadores no había transmitido su saber; la amenaza más reportada fue la falta de interés (75%) y el 79% manifestó disposición a participar en programas de conservación. Se concluye que el conocimiento sobre el tomate silvestre en las cuencas de Lima persiste como memoria residual, territorializada y en erosión activa, con un capital social comunitario disponible para su revitalización.
Palabras clave: etnobotánica; conservación biocultural; transmisión intergeneracional; conocimiento ecológico local; Solanum spp.; erosión del conocimiento.
ABSTRACT
This study estimated the prevalence, territorial structure and perceived threats of local knowledge about wild tomato (Solanum spp.) in the Rímac, Chillón and Lurín river basins (Lima, Peru). A semi-structured survey was administered to 100 adults at 11 sampling points in 10 districts of the provinces of Canta and Huarochirí, through purposive, chain-referral non-probability sampling. We estimated the prevalence of species recognition, tested its associations with Fisher’s exact test, Cramér’s V and Firth’s penalized logistic regression, built an Ethnobotanical Knowledge Index (EKI, 0–5) to measure depth of knowledge among holders, and explored knowledge profiles with Multiple Correspondence Analysis (MCA). 42% recognized the species, but only 21% had ever used it. Recognition was unrelated to sex, age, occupation or length of residence, but was associated with locality (Cramér’s V = 0.51) and basin (Rímac 62.1%; Lurín 56.7%; Chillón 17.1%). Prevalence and depth were dissociated: Antioquía had the most knowledge holders but the lowest EKI (1.3), whereas Huaros had few holders with the maximum EKI (5.0). MCA showed overlapping female and male profiles (31.9% of inertia in two dimensions). Among holders, 54.8% had never transmitted their knowledge; lack of interest was the most reported threat (75%), and 79% were willing to join conservation programmes. Knowledge about wild tomato in the Lima basins persists as residual, territorialized memory under active erosion, with community social capital available for revitalization.
Keywords: ethnobotany; biocultural conservation; intergenerational transmission; local ecological knowledge; Solanum spp.; knowledge erosion.
Recibido: 07-05-2026.
Aceptado: 28-09-2026.
|
El Perú ocupa una posición singular en la diversidad mundial del tomate: alberga 13 de las 17 especies reconocidas de Solanum sección Lycopersicon (Ministerio del Ambiente [MINAM], 2021; Peralta et al., 2008; Vilchez et al., 2019), lo que lo convierte en uno de los principales centros de origen y diversificación del tomate cultivado (Solanum lycopersicum L.). Estas especies silvestres constitu-yen un reservorio genético de importancia global por su variación alélica asociada a tolerancia a sequía, salinidad, plagas y enfermedades ausente en los cultivares modernos (Dempewolf et al., 2017; Ramírez-Ojeda et al., 2021), y su pérdida forma parte de una erosión más amplia de la diversidad hortícola y de sus parientes silvestres (van Zonneveld et al., 2026). Solanum es, además, uno de los géneros más ricos en endemismo en el país, con 74 especies endémicas registradas (Särkinen et al., 2015), y su conservación resulta estratégica para la seguridad alimentaria frente al cambio climático (FAO, 2019). En las cuencas de los ríos Lurín, Rímac y Chillón persisten poblaciones remanentes de tomate silvestre en bordes de ribera, terrazas agrícolas y chacras, desde el nivel del mar hasta aproximadamente 3 500 m de altitud (MINAM, 2021; Ramírez-Ojeda et al., 2021), con notable resiliencia frente a la perturbación de suelos, la contaminación hídrica y la reducción del caudal estacional (Vilchez et al., 2019). Sin embargo, la expansión urbana, la pérdida de prácticas agrícolas tradicionales y la escasa valoración institucional han favorecido su abandono, hasta ser percibido frecuentemente como “maleza” antes que como recurso cultural y genético (MINAM, 2021).
Desde la perspectiva de la memoria biocultural, biodiversidad y sistemas de saber tradicional son coevolutivos e interdependientes, de modo que la erosión de uno arrastra a la del otro (Toledo & Barrera-Bassols, 2008). En este marco, los saberes sobre recolección, preparación, uso medicinal y manejo in situ del tomate silvestre constituyen una interfaz viva entre el germoplasma y la comunidad que lo mantiene en el paisaje productivo (Alexiades, 1996; Gafforov et al., 2024; White et al., 2026). La conservación biocultural reconoce, por tanto, que la gestión de los recursos genéticos nativos no puede limitarse a su preservación biológica, sino que debe incorporar valores culturales, clasificaciones locales y prácticas de uso (Gavin et al., 2015; Swiderska et al., 2025). A escala global, se ha documentado empobrecimiento del conocimiento ecológico local en el 77%, asociado a modernización, integración de mercado y urbanización acelerada (Aswani et al., 2018), y la pérdida de las vías de transmisión es la amenaza directa más frecuente registrada en una clasificación mundial de amenazas al conocimiento ecológico tradicional (Tang & Gavin, 2016). Estudios recientes confirman el patrón en contextos urbanos y periurbanos de América Latina: los jóvenes muestran menor reconocimiento de especies que las generaciones mayores (Rivera Ramírez et al., 2025), el conocimiento etnobotánico se degrada a lo largo del gradiente periferia–centro urbano (Corroto et al., 2021) y la erosión del conocimiento se acelera cuando la especie se hace escasa en el paisaje (da Silva et al., 2026). En Lima Metropolitana, la expansión urbana sobre las cuencas bajas y medias del Rímac, Chillón y Lurín, junto con la migración campo–ciudad, la desvinculación educativa respecto del territorio y la preferencia por el conocimiento técnico-científico, ha erosionado la transmisión intergeneracional del saber agroecológico (Chevalier & Buckles, 2019); el conocimiento oral sobre plantas suele concentrarse en adultos mayores y corre riesgo de extinción si no existe transmisión activa hacia las generaciones jóvenes (Leonti, 2011).
Pese a ello, la mayor parte de los estudios sobre tomate silvestre en el Perú se ha concentrado en dimensiones genéticas y agronómicas, caracteriza-ción morfológica y molecular, distribución y descriptores edafoclimáticos (MINAM, 2021; Ramírez-Ojeda et al., 2021; Vilchez et al., 2019), dejando en segundo plano la dimensión etnobotánica y biocultural. La etnobotánica peruana cuenta con inventarios amplios de plantas medicinales en el norte y en los Andes (Bussmann & Sharon, 2006; de Feo, 2003; Monigatti et al., 2013; Silva et al., 2025), y con evidencia de que el tipo de conocimiento está determinado por la comunidad de residencia, la migración y el mercado (Mathez-Stiefel & Vandebroek, 2012), pero ninguno de esos trabajos aborda el tomate silvestre como taxón de interés ni las cuencas de Lima Metropolitana. La relevancia normativa del estudio se sustenta en la Ley N.° 26839 (1997), en la Ley N.° 27811 (2002) sobre conocimientos colectivos asociados a los recursos biológicos, en la Estrategia Nacional de Diversidad Biológica al 2050 (MINAM, 2024), en el Marco Mundial de la Biodiversidad de Kunming-Montreal (Convenio sobre la Diversidad Biológica, 2022) y en su alineamiento con los ODS 2, 11, 13 y 15 (Naciones Unidas, 2015).
En síntesis, existe un vacío de conocimiento: no se dispone de ningún estudio etnobotánico sistemático sobre el tomate silvestre en las cuencas del Rímac, Chillón y Lurín, ni de una línea de base que permita cuantificar el estado del saber local y orientar estrategias de conservación biocultural cultural-mente pertinentes (Albuquerque et al., 2019). El objetivo general de este estudio fue estimar la prevalencia, la estructura territorial, la profundidad y las amenazas percibidas del conocimiento local sobre el tomate silvestre (Solanum spp.) en comunidades de las tres cuencas de Lima.
Como objetivos específicos se planteó: (i) estimar la prevalencia del reconocimiento de la especie y sus predictores sociodemográficos y territoriales; (ii) caracterizar usos, partes utilizadas, frecuencia de uso y transmisión intergeneracional; (iii) medir la profundidad del conocimiento entre sus portadores y su variación territorial; y (iv) identificar las amenazas percibidas y las acciones de conservación priorizadas por la comunidad. Se declara desde el inicio, como limitación, que la denominación operativa Solanum spp. responde a la ausencia de determinación taxonómica formal en esta etapa del Proyecto.
METODOLOGÍA
Se desarrolló un estudio descriptivo de corte transversal con diseño de métodos mixtos, fundamentado en los lineamientos de la etnobotánica participativa (Albuquerque et al., 2019). El componente cuantitativo permitió estimar la prevalencia del conocimiento local y examinar sus variables asociadas; el componente cualitativo registró la dimensión narrativa y contextual de los saberes reportados. La investigación constituye el componente etnobotá-nico de una línea de trabajo más amplia sobre el tomate silvestre peruano, cuyo componente botánico-molecular se desarrolla en paralelo bajo la autorización SERFOR RD-000148-2025-DGGSPFFS-DGSPF (código AUT-IFL-2025-076) y se reportará por separado. La Figura 1 resume el flujo de selección de comunidades y participantes.
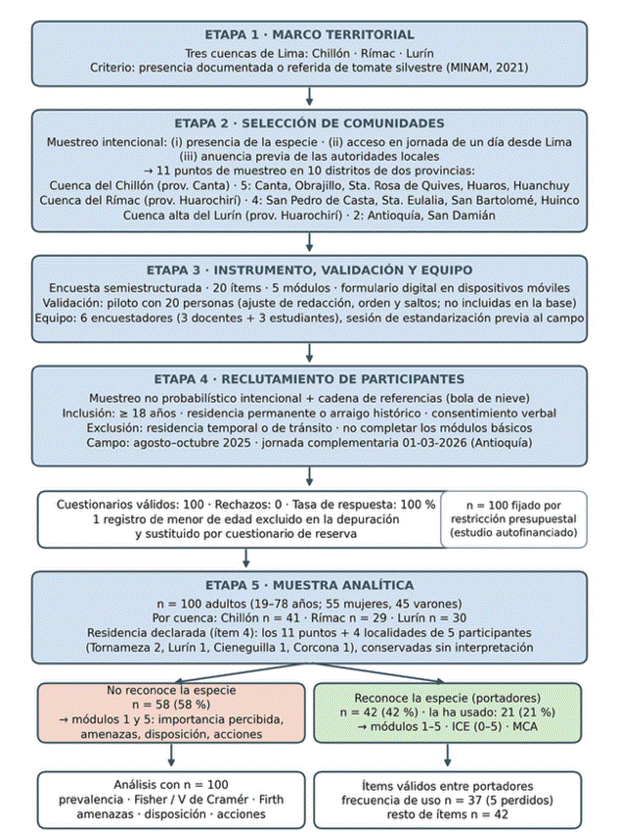
Figura 1. Flujograma de selección de comunidades y participantes. Etapa 1, marco territorial (tres cuencas); etapa 2, selección intencional de comunidades y los 11 puntos de muestreo por cuenca y provincia; etapa 3, instrumento, validación por piloto y equipo de campo; etapa 4, reclutamiento (muestreo no probabilístico con cadena de referencias, criterios de inclusión y exclusión, periodo de campo) y balance de respuesta; etapa 5, muestra analítica (n = 100) con su distribución por cuenca y la aclaración sobre la localidad de residencia declarada, y bifurcación entre quienes reconocen (n = 42) y no reconocen (n = 58) la especie, con los denominadores de cada análisis.
Área de estudio y selección de comunidades
El estudio se realizó en las cuencas de los ríos Chillón, Rímac y Lurín, que articulan la vertiente occidental de los Andes con la costa desértica de Lima Metropolitana. Las comunidades se seleccionaron de manera intencional con tres criterios: (i) presencia documentada o referida de poblaciones de tomate silvestre en bordes ribereños y terrazas agrícolas, según la Línea de Base de la Diversidad del Tomate Peruano (MINAM, 2021); (ii) accesibilidad logística desde Lima Metropolitana en jornadas de un día; y (iii) anuencia previa de las autoridades locales para recibir al equipo. Se establecieron 11 puntos de muestreo, correspondientes a capitales distritales y centros poblados de 10 distritos de las provincias de Canta (cuenca del Chillón: Canta, Obrajillo, Santa Rosa de Quives, Huaros y Huanchuy) y Huarochirí (cuenca del Rímac: San Pedro de Casta, Santa Eulalia, San Bartolomé y Huinco; cuenca alta del Lurín: Antioquía y San Damián). Cinco participantes encuestados en esos puntos declararon residir en otras localidades (Tornameza, Corcona, Cieneguilla y Lurín); dado que el instrumento registró el distrito o localidad de residencia y no el punto de aplicación, esas respuestas se conservan como categorías de residencia declarada en los análisis.
Instrumento, validación y equipo de campo
Se diseñó una encuesta semiestructurada de 20 ítems organizada en cinco módulos: (i) datos sociodemográficos; (ii) conocimiento del tomate silvestre, registrado como variable dicotómica (conoce / no conoce); (iii) usos, partes utilizadas, frecuencia y formas de preparación; (iv) fuente de aprendizaje, transmisión del saber y percepción sobre el conocimiento de las cohortes jóvenes; y (v) importancia percibida, amenazas percibidas, disposición a participar y acciones de conservación priorizadas. El instrumento se validó mediante una prueba piloto con 20 personas de características similares a la población objetivo, que permitió ajustar la redacción de los ítems, el orden de los módulos y los saltos del formulario; los cuestionarios del piloto no forman parte de la base analítica. No se realizó juicio de expertos formal, lo que se declara como limitación. La encuesta fue administrada por seis encuestadores (tres docentes y tres estudiantes de la Escuela Profesional de Ingeniería Ambiental), quienes participaron en una sesión de estandarización previa al trabajo de campo en la que se revisaron el instrumento, el guion de consentimiento y el manejo del formulario digital; la aplicación piloto sirvió, además, como entrenamiento práctico. Las encuestas se administraron de forma individual, en castellano, mediante formularios digitales en dispositivos móviles, lo que garantizó un registro estandarizado y trazable. El trabajo de campo incluyó observación participante y registro fotográfico de especímenes, parcelas y riberas.
Selección de participantes, tamaño de muestra y tasa de respuesta
Se aplicó un muestreo no probabilístico inten-cional, complementado con cadena de referencias (bola de nieve) a partir de las autoridades y de los primeros participantes de cada punto de muestreo. Criterios de inclusión: edad igual o superior a 18 años; residencia permanente o arraigo histórico en la comunidad; aceptación verbal de participar tras la explicación del propósito del estudio. Criterios de exclusión: residencia temporal o de tránsito; imposibilidad de completar los módulos básicos del cuestionario. El protocolo original preveía seleccionar informantes con conocimiento profundo de la especie; en la práctica se aplicó un muestreo poblacional general sin cribado previo por conocimiento, desviación deliberada que permite estimar la prevalencia del reconocimiento en la población adulta y que se declara expresamente. El tamaño muestral (n = 100) no se calculó con criterios de potencia estadística: fue fijado por la restricción presupuestal de un estudio autofinanciado, con la meta operativa de al menos 25 participantes por cuenca, que se cumplió en las tres (Chillón n = 41; Lurín n = 30; Rímac n = 29). Ninguna de las personas invitadas rechazó participar (tasa de respuesta del 100%), lo que se atribuye a la coordinación previa con las autoridades comunales y a que el instrumento no solicitaba datos personales. Un registro correspondiente a una persona menor de edad, detectado en la depuración, fue excluido y sustituido por un cuestionario de reserva aplicado en la misma localidad.
Variables e índices
La variable dependiente principal fue el recono-cimiento del tomate silvestre, codificado de forma dicotómica (1 = conoce, 0 = no conoce). Las variables independientes fueron sexo, edad, ocupación, localidad de residencia declarada (15 categorías: los 11 puntos de muestreo y cuatro localidades adicionales), cuenca hidrográfica y tiempo de residencia en la comunidad (< 5, 5–10, > 10 años).
Para disponer de una medida de la profundidad del conocimiento, complementaria al reconocimiento binario, se construyó un Índice de Conocimiento Etnobotánico (ICE) aplicable únicamente a los participantes que reconocieron la especie. El ICE asigna un punto por cada uno de cinco componentes: (1) reporta al menos un uso efectivo (alimentario o medicinal); (2) identifica una parte específica de la planta, excluyendo “no sabe / no responde”; (3) reporta recolección o consumo efectivo, excluyendo “nunca”; (4) menciona al menos una dolencia tratada; y (5) ha transmitido el conocimiento a otras personas. El índice es la suma simple de los cinco componentes, con recorrido de 0 a 5 (ICE = puso + pparte + pfrecuencia + pdolencia + ptransmisión). Se trata de un índice construido ad hoc para este estudio, sin validación psicométrica, que asume igual ponderación de sus componentes; sus resultados se reportan con carácter exploratorio.
El Índice de Consenso del Informante (Trotter & Logan, 1986) requiere, por construcción, una pluralidad de taxones dentro de cada categoría de dolencia (Heinrich et al., 1998). Dado que este estudio documenta una única entidad taxonómica operativa, dicho índice no es aplicable y no se reporta; las menciones medicinales se presentan como frecuencias descriptivas.
Análisis estadístico
Los porcentajes se calcularon sobre el número de respuestas válidas de cada ítem, cuyo denominador se declara. Los ítems de los módulos 3 y 4 se aplicaron únicamente a quienes reconocieron la especie (n = 42), por lo que los valores ausentes en esas variables corresponden a saltos de formulario; el único ítem con valores perdidos genuinos fue la frecuencia de uso (n = 5). No se aplicó imputación. La categoría “otro uso” del ítem de usos recogió íntegramente respuestas de no uso (“no lo ha usado”) consignadas en el campo abierto y se recodificó en consecuencia.
La asociación entre el reconocimiento de la especie y las variables categóricas se evaluó con la prueba exacta de Fisher (para tablas mayores de 2 × 2, con valor p estimado por simulación de Monte Carlo, B = 20 000), dada la presencia de frecuencias esperadas menores de cinco. La magnitud del efecto se cuantificó con la V de Cramér (Cramér, 1946), interpretada según los umbrales convencionales de 0,10 (pequeño), 0,30 (moderado) y 0,50 (grande). Los valores p de la familia de cinco pruebas bivariadas (sexo, localidad, cuenca, ocupación y tiempo de residencia) se ajustaron con el procedimiento de Benjamini y Hochberg (1995).
Para el análisis multivariable se ajustó una regresión logística penalizada con corrección de Firth (1993), indicada para muestras moderadas y capaz de producir estimaciones finitas bajo separación cuasi-completa (Heinze & Schemper, 2002). Los predictores fueron la edad (continua, en años), el sexo (referencia: femenino), el tiempo de residencia (ordinal codificado 1–3) y la ocupación (referencia: agricultor/a). Los intervalos de confianza al 95% se obtuvieron por perfil de verosimilitud penalizada y los valores p mediante la prueba de razón de verosimilitudes penalizada. La localidad de residencia no se incorporó al modelo pese a ser la variable con mayor asociación bivariada: de sus 15 categorías, cinco tienen tres o menos participantes y tres un único participante, lo que configura celdas con separación completa que impiden una estimación estable incluso bajo penalización; su efecto se reporta exclusivamente a nivel bivariado. Con 42 eventos y siete parámetros, el modelo se sitúa en el límite inferior de la regla de diez eventos por variable (Peduzzi et al., 1996).
La variación del ICE entre grupos se evaluó con la prueba de Kruskal-Wallis (Kruskal & Wallis, 1952), reportando el tamaño de efecto eta cuadrado, seguida de comparaciones por pares de Dunn (1964) con ajuste de Bonferroni; la asociación entre edad e ICE se evaluó con el coeficiente de Spearman. La estructura de los perfiles de conocimiento de los portadores se exploró mediante Análisis de Correspondencias Múltiples (MCA) sobre ocho variables categóricas (sexo, ocupación, tiempo de residencia, uso, parte utilizada, fuente de aprendizaje, transmisión e importancia percibida), con elipses de confianza al 95% de los centroides por sexo (Lê et al., 2008); el MCA es una técnica descriptiva y sus resultados no admiten interpretación inferencial. El nivel de significación fue α = 0,05 bilateral. Los análisis se ejecutaron en R 4.2.3 (paquetes logistf, FactoMineR, rstatix) y se reprodujeron íntegramente en Python 3.11 (scipy, scikit-posthocs, prince) para la generación del material suplementario; la base anonimizada, el diccionario de variables y las tablas derivadas se entregan como Material Suplementario S1.
Consideraciones éticas
Esta es una investigación etnobotánica observacional, sin intervención sobre las personas, sin recolección de muestras biológicas humanas y sin registro de datos de salud; no constituye investigación biomédica en el sentido de la Declaración de Helsinki ni investigación clínica bajo el D.S. N.° 021-2017-SA, por lo que no correspondió su sometimiento a un comité de ética en investigación biomédica. El marco ético aplicado fue el Código de Ética de la International Society of Ethnobiology (ISE, 2006) y las pautas de Albuquerque et al. (2019). El instrumento no registró nombres, documentos de identidad, direcciones, teléfonos ni coordenadas de domicilio; las únicas variables individuales fueron edad, sexo, ocupación, localidad y tramo de años de residencia, que no permiten la reidentificación, por lo que no se trata de datos personales en el sentido de la Ley N.° 29733. Todas las personas fueron informadas del propósito del estudio, del carácter voluntario de su participación, de la ausencia de compensación económica, de su derecho a retirarse y del tratamiento anónimo y agregado de la información; el consentimiento se obtuvo de forma verbal, modalidad consistente con el principio de consentimiento previo, libre e informado del Código ISE. El ingreso a cada comunidad se coordinó con las autoridades locales, en consi-deración del régimen de protección de conocí-mientos colectivos de la Ley N.° 27811. El estudio no involucró pueblos indígenas u originarios en el sentido del Convenio 169 de la OIT ni de la Base de Datos de Pueblos Indígenas u Originarios del Ministerio de Cultura; los participantes pertenecen a comunidades campesinas con organización municipal convencional. Conforme al principio de reciprocidad, los resultados serán devueltos a las comunidades en jornadas comunitarias.
Caracterización de la muestra
La muestra estuvo compuesta por 100 participantes adultos (Tabla 1), con una edad media de 46,5 años (DE = 13,8; mediana = 48; Q1–Q3 = 37–56; rango 19–78). El 55% fueron mujeres y el 45% varones, con distribuciones etarias comparables (media de 45,2 y 48,0 años, respectivamente). La ocupación predominante fue la agricultura (44%), seguida del comercio (27%), el trabajo doméstico (11%), la actividad estudiantil (9%) y otras ocupaciones (9%). El 89% residía en su comunidad desde hacía más de 10 años, lo que confirma el arraigo territorial buscado en el diseño. El 54% consideró el conocimiento sobre el tomate silvestre “muy importante”, el 30% “medianamente importante”, el 12% “poco importante” y el 4% “nada importante”. Por cuenca, la muestra se distri-buyó en Chillón (41%; cinco puntos de muestreo), Lurín (30%; dos) y Rímac (29%; cuatro).
Prevalencia del reconocimiento y sus predictores
El 42% de la muestra (n = 42) declaró conocer el tomate silvestre. La prevalencia fue del 47,3% en mujeres y del 35,6% en varones, sin diferencia significativa (prueba exacta de Fisher p = 0,309; V de Cramér = 0,12). Tampoco se asoció con la ocupación (p = 0,363; V = 0,22) ni con el tiempo de residencia (p = 0,260; V = 0,17). En contraste, la variación entre localidades de residencia fue marcada (p = 0,012; V = 0,51, magnitud grande; p ajustado = 0,031): entre los 11 puntos de muestreo, la prevalencia fue desde el 11,1% en Obrajillo y Santa Rosa de Quives hasta el 75% en San Pedro de Casta y Santa Eulalia (Tabla 2, Panel A); las cuatro localidades de residencia con n ≤ 2 (Tornameza, Lurín, Cieneguilla y Corcona) no se interpretan. El patrón se replica a escala de cuenca (p < 0,001; V = 0,42; p ajustado < 0,001): Rímac 62,1%, Lurín 56,7% y Chillón 17,1%.
En el modelo de regresión logística penalizada (Tabla 2, Panel B), ningún predictor individual alcanzó significación estadística: todos los intervalos de confianza al 95% cruzan la unidad. Las estimaciones puntuales apuntan a una menor probabilidad de reconocimiento en varones (OR = 0,44; IC 95%: 0,18–1,04; p = 0,062) y en amas de casa respecto de agricultores (OR = 0,28; IC 95%: 0,06–1,19; p = 0,085), y a un gradiente positivo con la edad (OR = 1,03 por año; IC 95%: 0,99–1,08), pero la amplitud de los intervalos refleja la potencia limitada del modelo y no debe interpretarse como evidencia de ausencia de efecto.
Usos, partes utilizadas, frecuencia y transmisión
Entre los 42 participantes que reconocieron la especie, la mitad (n = 21; 50,0%) declaró expresa-mente no haberla utilizado nunca, respuesta consignada en el campo abierto del ítem correspondiente. Entre quienes sí la han utilizado, 19 (45,2%) reportaron alimentación directa y 2 (4,8 %) medicina tradicional. Referido a la muestra completa, el 42% reconoce la especie, pero solo el 21% la ha usado alguna vez (Tabla 3, Panel A). La parte más citada fue el fruto (52,4%), seguida de toda la planta (28,6%) y las semillas (2,4%); el 16,7 % no supo precisar. Sobre los 37 portadores que respondieron el ítem de frecuencia, el 37,8% nunca recolecta ni consume la especie, el 24,3% lo hace siempre que está en temporada, el 21,6% muy rara vez y el 16,2% de vez en cuando. Seis participantes (6% de la muestra; 14,3% de los portadores) mencionaron alguna aplicación medicinal: heridas (dos menciones, Huaros; infusión), dolor de estómago (Huaros; infusión), afección bronquial (San Pedro de Casta), fiebre y tos (San Bartolomé; consumo directo) y acné (Lurín; aplicación tópica de las semillas). Este volumen es insuficiente para cualquier análisis etnofarmacológico y se reporta con la cautela toxicológica que impone la presencia de glicoalcaloides en las partes vegetativas de las solanáceas (Friedman, 2006).
La fuente de aprendizaje dominante fueron los padres y abuelos (42,9%), seguida del aprendizaje propio por observación en el paisaje (28,6%); la comunidad y los vecinos aportaron solo el 14,3% en conjunto (Tabla 3, Panel B). El 54,8% de los portadores no había transmitido el conocimiento a otras personas. El 66,7% percibió que “muy pocos” jóvenes de su comunidad conocen la especie y el 11,9% que “ninguno” la conoce (78,6% acumulado); solo el 9,5% consideró que los jóvenes la conocen en gran parte.
Tabla 1
Caracterización sociodemográfica y territorial de la muestra (n = 100)
|
Bloque |
Categoría |
n |
% |
|
Sexo |
Femenino |
55 |
55,0 |
|
Masculino |
45 |
45,0 |
|
|
Edad (años) |
Media (DE) |
46,5 (13,8) |
— |
|
Mediana (Q1–Q3) |
48 (37–56) |
— |
|
|
Rango |
19–78 |
— |
|
|
Ocupación |
Agricultor/a |
44 |
44,0 |
|
Comerciante |
27 |
27,0 |
|
|
Trabajo doméstico |
11 |
11,0 |
|
|
Estudiante |
9 |
9,0 |
|
|
Otra |
9 |
9,0 |
|
|
Años de residencia |
> 10 años |
89 |
89,0 |
|
5–10 años |
6 |
6,0 |
|
|
< 5 años |
5 |
5,0 |
|
|
Importancia percibida |
Muy importante |
54 |
54,0 |
|
Medianamente importante |
30 |
30,0 |
|
|
Poco importante |
12 |
12,0 |
|
|
Nada importante |
4 |
4,0 |
|
|
Cuenca |
Chillón (5 puntos de muestreo) |
41 |
41,0 |
|
Lurín (2 puntos de muestreo) |
30 |
30,0 |
|
|
Rímac (4 puntos de muestreo) |
29 |
29,0 |
Tabla 2
Prevalencia del reconocimiento del tomate silvestre y sus predictores (n = 100)
|
Panel A · Prevalencia por punto de muestreo y cuenca |
||||
|
Punto de muestreo a |
Cuenca |
n total |
n conoce |
% conoce |
|
San Pedro de Casta |
Rímac |
12 |
9 |
75,0 |
|
Santa Eulalia |
Rímac |
4 |
3 |
75,0 |
|
Antioquía |
Lurín |
22 |
13 |
59,1 |
|
San Bartolomé |
Rímac |
9 |
5 |
55,6 |
|
San Damián |
Lurín |
6 |
3 |
50,0 |
|
Huaros |
Chillón |
8 |
3 |
37,5 |
|
Huinco |
Rímac |
3 |
1 |
33,3 |
|
Canta |
Chillón |
6 |
1 |
16,7 |
|
Huanchuy |
Chillón |
7 |
1 |
14,3 |
|
Obrajillo |
Chillón |
9 |
1 |
11,1 |
|
Santa Rosa de Quives |
Chillón |
9 |
1 |
11,1 |
|
Tornameza b |
Chillón |
2 |
0 |
0,0 |
|
Lurín b |
Lurín |
1 |
1 |
100,0 |
|
Cieneguilla b |
Lurín |
1 |
0 |
0,0 |
|
Corcona b |
Rímac |
1 |
0 |
0,0 |
|
Cuenca del Rímac |
|
29 |
18 |
62,1 |
|
Cuenca del Lurín |
|
30 |
17 |
56,7 |
|
Cuenca del Chillón |
|
41 |
7 |
17,1 |
|
Total |
|
100 |
42 |
42,0 |
|
Panel B · Regresión logística penalizada con corrección de Firth |
||||
|
Predictor |
OR |
IC 95 % |
p |
|
Edad (por año) |
1,03 |
0,99–1,08 |
0,134 |
|
Sexo masculino (ref.: femenino) |
0,44 |
0,18–1,04 |
0,062 |
|
Tiempo de residencia (por nivel, 1–3) |
1,40 |
0,54–4,88 |
0,515 |
|
Ocupación: ama de casa c |
0,28 |
0,06–1,19 |
0,085 |
|
Ocupación: comerciante c |
0,99 |
0,32–3,18 |
0,989 |
|
Ocupación: estudiante c |
0,67 |
0,08–5,00 |
0,700 |
|
Ocupación: otra c |
0,67 |
0,14–2,97 |
0,605 |
Nota. Diferencias entre las 15 localidades de residencia: prueba exacta de Fisher (Monte Carlo, B = 20 000) p = 0,012; V de Cramér = 0,51; p ajustado (Benjamini-Hochberg, cinco pruebas) = 0,031. Diferencias entre cuencas: p < 0,001; V = 0,42. Diferencias por sexo: p = 0,309; V = 0,12. a Los 11 puntos de muestreo corresponden a 10 distritos de las provincias de Canta y Huarochirí. b Localidad de residencia declarada por participantes encuestados en los puntos anteriores (n ≤ 2): estimaciones indicativas, excluidas de la interpretación. c Categoría de referencia: agricultor/a. IC 95 % por perfil de verosimilitud penalizada; p por razón de verosimilitudes penalizada. La localidad no se incluyó en el modelo por separación completa en celdas de baja frecuencia.
Tabla 3
Repertorio etnobotánico y transmisión intergeneracional entre los portadores del conocimiento (n = 42)
|
Panel A · Usos, partes utilizadas y frecuencia de uso |
|||||
|
Variable |
Categoría |
n |
% |
||
|
Uso reportado |
No lo ha usado |
21 |
50,0 |
||
|
Alimentación directa |
19 |
45,2 |
|||
|
Medicina tradicional |
2 |
4,8 |
|||
|
Parte utilizada |
Fruto |
22 |
52,4 |
||
|
Toda la planta |
12 |
28,6 |
|||
|
No precisa |
7 |
16,7 |
|||
|
Semillas |
1 |
2,4 |
|||
|
Frecuencia de uso a |
Nunca |
14 |
37,8 |
||
|
Siempre que está en temporada |
9 |
24,3 |
|||
|
Muy rara vez |
8 |
21,6 |
|||
|
De vez en cuando |
6 |
16,2 |
|||
|
Mención medicinal |
Al menos una dolencia |
6 |
14,3 |
||
|
Panel B · Transmisión del saber y percepción del conocimiento juvenil |
|||||
|
Variable |
Categoría |
n |
% |
||
|
Fuente de aprendizaje |
Padres o abuelos |
18 |
42,9 |
||
|
Aprendizaje propio |
12 |
28,6 |
|||
|
Otra fuente |
6 |
14,3 |
|||
|
Comunidad / asociaciones |
3 |
7,1 |
|||
|
Vecinos o amigos |
3 |
7,1 |
|||
|
Transmitió a otros |
No |
23 |
54,8 |
||
|
Sí |
19 |
45,2 |
|||
|
Percepción sobre los jóvenes |
Muy pocos conocen |
28 |
66,7 |
||
|
Ninguno conoce |
5 |
11,9 |
|||
|
Algunos conocen |
5 |
11,9 |
|||
|
Sí, en gran parte |
4 |
9,5 |
|||
Nota. a n válido = 37 (5 valores perdidos). La categoría “otro uso” del formulario recogió íntegramente respuestas de no uso y se reporta como tal.
Profundidad del conocimiento (ICE) y perfiles multivariados
Entre los 42 portadores, el ICE presentó una media de 2,48 (DE = 1,52; mediana = 2; RIC = 1–4; rango 0–5). No varió significativamente entre sexos (Kruskal-Wallis H = 0,92; p = 0,338; medias de 2,31 en mujeres y 2,75 en varones) ni se correlacionó con la edad (Spearman ρ = −0,12; p = 0,447), lo que indica que en esta muestra la profundidad del saber no está concentrada sistemáticamente en los informantes mayores. En cambio, varió fuertemente entre localidades de residencia (H = 30,81; p = 0,001; η² = 0,66, magnitud grande) y entre cuencas (H = 16,88; p < 0,001; η² = 0,38): Chillón 4,29, Rímac 2,72 y Lurín 1,47 (Dunn-Bonferroni Chillón–Lurín p < 0,001). La única comparación por pares entre localidades que superó el ajuste de Bonferroni fue Antioquía–Huaros (p = 0,017). Los tres portadores de Huaros presentaron el ICE máximo (5,0), mientras que los 13 portadores de Antioquía promediaron 1,31 (Tabla 4, Panel B).
Este resultado revela una disociación entre la prevalencia del conocimiento (cuántas personas reconocen la especie) y su profundidad (cuánto sabe quién la reconoce): la ordenación de localidades por prevalencia no coincide con su ordenación por ICE. Antioquía combina la mayor densidad de portadores (59,1%) con el repertorio más superficial; Huaros, en la cuenca del Chillón, la de menor prevalencia, conserva pocos portadores con el repertorio completo. Dado el reducido número de portadores por localidad, el contraste debe leerse como exploratorio.
El MCA sobre los 42 portadores explicó el 17,8% de la inercia total en la primera dimensión y el 14,2% en la segunda 31,9% acumulado; Figura 2). En el mapa de categorías (Figura 2A), la primera dimensión opone los perfiles de uso efectivo (alimentación directa, fruto, transmisión afirma-tiva, aprendizaje de padres o abuelos) a los perfiles de reconocimiento sin uso (no lo ha usado, toda la planta, sin transmisión, aprendizaje propio u otra fuente); las categorías con mayor contribución fueron “toda la planta”, “alimentación directa”, “no lo ha usado” y “padres o abuelos”. En el mapa de informantes (Figura 2B), las elipses de confianza al 95% de los centroides femenino y masculino se superponen, en coherencia con la ausencia de diferencias bivariadas por sexo.
Amenazas percibidas y disposición para la conservación
Las amenazas percibidas (Tabla 4, Panel A) presentaron una jerarquía claramente liderada por factores culturales antes que ecológicos: el 75% mencionó la falta de interés, el 50% la pérdida del conocimiento tradicional, el 17% el cambio clima-tico, el 11% la contaminación ambiental y solo el 5% la expansión urbana. El 79% manifestó disposi-ción a participar en programas comunitarios de conservación (17% “tal vez”; 4% “no”), y las acciones más demandadas fueron la capacitación práctica (36%), la participación a nivel municipal (33%) y las charlas de divulgación (31%). El resultado más consistente de este estudio no es la prevalencia del reconocimiento sino su disociación respecto del uso: el 42% de la muestra reconoce el tomate silvestre, pero solo el 21% lo ha utilizado alguna vez, y entre los propios portadores la mitad declara no haberlo usado nunca. El conocimiento sobrevive como categoría de reconocimiento, la especie tiene nombre y se identifica en el paisaje, sin sostener ya una práctica. Esta configuración corresponde a lo que Toledo & Barrera-Bassols (2008) describen como memoria residual: el saber persiste en el registro cognitivo después de que las condiciones materiales que lo producían han desaparecido.
Tabla 4
Amenazas percibidas, capital social y profundidad del conocimiento
|
Panel A · Amenazas percibidas, disposición y acciones priorizadas (n = 100) |
||||||
|
Bloque |
Categoría |
n |
% |
|||
|
Amenazas percibidas a |
Falta de interés |
75 |
75,0 |
|||
|
Pérdida del conocimiento tradicional |
50 |
50,0 |
||||
|
Cambio climático |
17 |
17,0 |
||||
|
Contaminación ambiental |
11 |
11,0 |
||||
|
Expansión urbana |
5 |
5,0 |
||||
|
Disposición a participar |
Sí |
79 |
79,0 |
|||
|
Tal vez |
17 |
17,0 |
||||
|
No |
4 |
4,0 |
||||
|
Acción priorizada |
Capacitación práctica |
36 |
36,0 |
|||
|
Participación a nivel municipal |
33 |
33,0 |
||||
|
Charlas de divulgación |
31 |
31,0 |
||||
|
Panel B · Índice de Conocimiento Etnobotánico (ICE, 0–5) entre los portadores (n = 42) |
||||||
|
Variable / prueba |
Estadístico |
p |
Magnitud |
|||
|
ICE global · media (DE); mediana (RIC) |
2,48 (1,52); 2 (1–4) |
— |
— |
|||
|
ICE por cuenca · media (n) |
Chillón 4,29 (7) · Rímac 2,72 (18) · Lurín 1,47 (17) |
— |
— |
|||
|
ICE Antioquía · media (n) |
1,31 (13) |
— |
— |
|||
|
ICE Huaros · media (n) |
5,00 (3) |
— |
— |
|||
|
Kruskal-Wallis ICE ~ localidad |
H = 30,81 |
0,001 |
η² = 0,66 (grande) |
|||
|
Kruskal-Wallis ICE ~ cuenca |
H = 16,88 |
< 0,001 |
η² = 0,38 (grande) |
|||
|
Kruskal-Wallis ICE ~ sexo |
H = 0,92 |
0,338 |
η² ≈ 0 (trivial) |
|||
|
Dunn-Bonferroni Antioquía vs. Huaros |
— |
0,017 b |
— |
|||
|
Spearman edad ~ ICE |
ρ = −0,12 |
0,447 |
trivial |
|||
Nota. a Respuesta múltiple. b Única comparación por pares entre localidades significativa tras el ajuste de Bonferroni. ICE = suma de cinco indicadores binarios (uso efectivo, parte específica, uso activo, dolencia mencionada, transmisión).
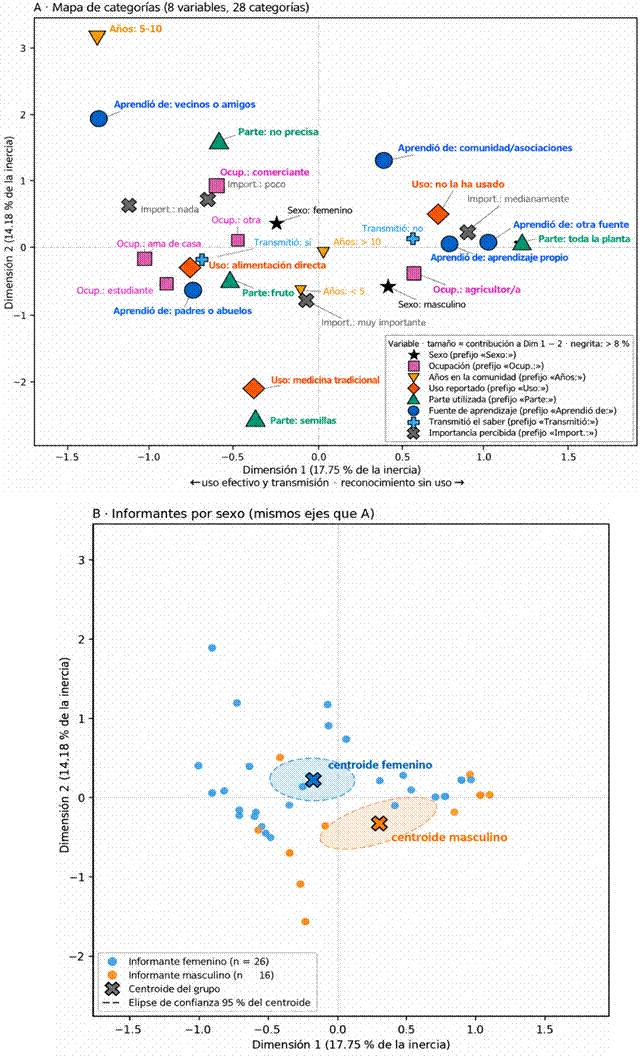
Figura 2. Análisis de Correspondencias Múltiples (MCA) de los perfiles de conocimiento de los 42 portadores. A, mapa de categorías: cada símbolo es una categoría de las ocho variables (sexo, ocupación, años en la comunidad, uso reportado, parte utilizada, fuente de aprendizaje, transmisión e importancia percibida); la etiqueta lleva el prefijo de la variable, el tamaño del símbolo es proporcional a su contribución a las dos primeras dimensiones y en negrita se destacan las categorías con contribución mayor del 8%. La dimensión 1 opone los perfiles de uso efectivo y transmisión (izquierda) a los de reconocimiento sin uso (derecha). B, informantes sobre los mismos ejes, coloreados por sexo, con el centroide de cada grupo (cruz) y su elipse de confianza al 95% (línea discontinua). Dim 1: 17,8%; Dim 2: 14,2%; inercia acumulada: 31,9%.
El análisis multivariable no identificó variables sociodemográficas individuales, sexo, edad, ocupación ni tiempo de residencia, como predictores significativos del reconocimiento, mientras que la localidad y la cuenca mostraron asociaciones bivariadas de magnitud grande. Este resultado es compatible con la hipótesis de que el saber etnobotánico opera como un recurso de propiedad común (Ostrom, 1990), construido y sostenido a escala comunitaria más que individual, y coincide con lo reportado en el Perú andino, donde el tipo de conocimiento sobre plantas medicinales está determinado por la comunidad de residencia, la migración y el mercado (Mathez-Stiefel & Vandebroek, 2012), y con hallazgos recientes en Brasil, donde de entre edad, sexo, escolaridad y localidad, solo esta última influyó en el conocimiento tradicional (Dos Santos et al., 2025). Swiderska et al. (2025), en comunidades quechuas de Lares (Cusco), encontraron que los valores de reciprocidad y manejo colectivo son los predictores más robustos de la vitalidad del conocimiento biocultural y que esos valores se aprenden viviendo en el lugar. La heterogeneidad entre San Pedro de Casta y Santa Eulalia, donde el reconocimiento permanece activo, y las localidades de la cuenca del Chillón, donde se ha atenuado, refleja trayectorias diferenciadas de relación con el paisaje agrario y, probablemente, diferencias en la abundancia local de la especie (Ramírez-Ojeda et al., 2021; Vilchez et al., 2019). Debe subrayarse, no obstante, que la dimensión territorial se sustenta en evidencia bivariada, porque la localidad no pudo incorporarse al modelo ajustado.
La segunda disociación es territorial: la ordenación de localidades por prevalencia no coincide con su ordenación por profundidad. En Antioquía muchas personas reconocen la especie con un repertorio superficial; en Huaros pocas la reconocen, pero quienes lo hacen conservan el repertorio completo. Si el patrón se confirmara con muestras mayores, tendría consecuencias operativas divergentes: donde el conocimiento es extenso y superficial, la intervención pertinente es la reactivación de la práctica; donde es escaso y profundo, es el registro urgente y la transmisión dirigida antes de que se pierdan los últimos portadores. La ausencia de correlación entre edad e ICE es, en este sentido, un dato relevante: contradice la expectativa de que el saber se concentre en los mayores (Leonti, 2011) y sugiere que la erosión ha alcanzado ya a las cohortes adultas, no solo a las jóvenes.
La superposición de los perfiles femenino y masculino en el MCA y la ausencia de diferencias bivariadas contrastan con la especialización de género reportada en otros contextos, como el conocimiento medicinal mapuche (Molares & Ladio, 2009), los roles diferenciados en el norte del Perú (Bussmann & Sharon, 2006) o las diferencias de género en comunidades asháninka (Kujawska & Albán-Castillo, 2024). Dos lecturas son compatibles con los datos: que el tomate silvestre sea una especie de conocimiento compartido sin especialización de rol, o que la erosión generalizada haya difuminado diferencias que pudieron existir. En ambos casos, la implicación práctica es que las estrategias de revitalización pueden diseñarse de manera transversal al género.
La jerarquía de amenazas percibidas invierte la lógica convencional de los programas de conservación de agrobiodiversidad, que priorizan las amenazas ecológicas (Dempewolf et al., 2017; MINAM, 2024): los propios habitantes identifican como amenaza principal un factor actitudinal, la indiferencia. En la clasificación de Tang y Gavin (2016), la “falta de interés” corresponde a la pérdida de vías de transmisión, la amenaza directa más frecuente a escala mundial. La baja mención de la contaminación (11%) y de la expansión urbana (5%) no significa que estos factores sean irrelevantes, las cuencas del Rímac y del Chillón tienen problemas documentados de contaminación hídrica y presión urbanística, sino que la comunidad no los percibe como los más urgentes para el saber. Ello desplaza el centro de gravedad de la intervención desde la restauración ecológica hacia la revitalización cultural, en línea con lo observado en sistemas agrícolas familiares andino-patagónicos (Grimaldi & Ladio, 2025; Rico Lenta & Ladio, 2026) y con el riesgo de homogeneización biocultural por desplazamiento de usos de especies nativas (Jarić et al., 2025). El 79% de disposición a participar constituye el capital social sobre el que puede apoyarse esa revitalización, aunque debe leerse como cota superior por el posible sesgo de deseabilidad social.
La Tabla 5 sitúa los resultados en el contexto de estudios etnobotánicos cuantitativos del Perú, de otros países latinoamericanos y de otras regiones. Ningún trabajo previo ofrece una línea de base sobre el tomate silvestre en las cuencas de Lima, por lo que la comparación se establece sobre métricas análogas de reconocimiento, transmisión y determinantes del conocimiento. La convergencia más notable es la primacía del factor territorial sobre el individual (Dos Santos et al., 2025; Mathez-Stiefel & Vandebroek, 2012) y la aceleración de la erosión en contextos urbanos o de integración al mercado (Ayenew et al., 2026; Corroto et al., 2021; Reyes-García et al., 2013; Rivera Ramírez et al., 2025).
Tabla 5
Comparación con estudios etnobotánicos cuantitativos en el Perú y otras regiones
|
Estudio |
País / región |
n |
Ámbito y diseño |
Métrica comparable |
Hallazgo sobre erosión o transmisión |
|
Este estudio |
Perú, cuencas Rímac–Chillón–Lurín (11 puntos de muestreo, 10 distritos) |
100 |
Solanum spp. silvestre; encuesta transversal |
42% reconoce; 21% usó; 54,8% de portadores no transmitió; falta de interés 75%; 79% participaría |
Varía por localidad y cuenca, no por sexo ni edad |
|
Monigatti et al. (2013) |
Perú, Bolívar (La Libertad) |
120 |
Plantas medicinales; entrevistas semiestructuradas |
140 especies; alta concordancia entre comunidades; aprendizaje de padres y abuelos |
Transmisión vertical aún activa |
|
Mathez-Stiefel & Vandebroek (2012) |
Perú (Cusco) y Bolivia (Cochabamba) |
36 hogares |
Plantas medicinales; listado libre |
Conocimiento determinado por comunidad, edad, migración y mercado |
Transmisión vertical y horizontal equiparables |
|
Corroto et al. (2021) |
Perú, Chachapoyas (urbano) |
450 |
Plantas medicinales; entrevistas |
Conocimiento mayor en periferia que en centro; 94% del centro compra en mercados |
Gradiente urbano de erosión |
|
Reyes-García et al. (2013) |
Bolivia, Amazonía (tsimane’) |
1151 |
Usos de plantas; panel 2000–2009 |
Descenso de reportes de 9% a 26% en nueve años |
Erosión mayor cerca de pueblos y mercados |
|
Brandt et al. (2013) |
Bolivia, Andes |
— |
Especies agroforestales; listado libre, GLMM |
Conocimiento aumenta con edad y disminuye con migración |
Sustitución de especies nativas |
|
Dos Santos et al. (2025) |
Brasil, Maranhão |
— |
Fauna; cuestionarios, GLM |
Edad, sexo y escolaridad no significativos; solo la localidad |
Patrón territorial idéntico al presente |
|
Rivera Ramírez et al. (2025) |
México, Morelia (urbano) |
112 |
Luciérnagas; tres generaciones |
Jóvenes con menor reconocimiento |
Pérdida de memoria colectiva por urbanización |
|
Ayenew et al. (2026) |
Etiopía, Gondar |
180 |
Plantas medicinales; urbano vs. rural |
Diferencias rural–urbano (p = 0,001) y por edad (p = 0,013) |
Erosión acelerada por urbanización |
|
Alrhmoun et al. (2025) |
Italia, Biella (prealpino) |
15 |
Plantas silvestres comestibles; diacrónico 1970–2025 |
93 → 82 especies |
Pérdidas por cambio socioeconómico |
|
Tang & Gavin (2016) |
Global (48 países) |
137 cuestionarios |
Amenazas al conocimiento ecológico tradicional |
Degradación en 87%–89% de los casos |
Pérdida de vías de transmisión como amenaza directa más frecuente |
|
Aswani et al. (2018) |
Global (revisión) |
— |
Conocimiento ecológico local; revisión sistemática |
77% de los estudios reporta pérdida |
Pérdida mayor en conocimiento medicinal y etnobotánico |
La denominación Solanum spp. es una categoría operativa de campo. La ausencia de vouchers, herborización y determinación por especialistas impide atribuir los saberes documentados a especies concretas y condiciona toda extrapolación genética, fitoquímica o de prioridades de conservación (Peralta et al., 2008; Vilchez et al., 2019). Es la limitación de mayor alcance.
El estudio es transversal y el muestreo no probabilístico, con reclutamiento por cadena de referencias; no permite inferencia estadística formal a la población de las cuencas, ni establecer causalidad, ni estimar la velocidad de la erosión. El tamaño muestral (n = 100) fue fijado por restricción presupuestal y no por cálculo de potencia. La distribución de participantes entre puntos de muestreo es muy desigual (rango 3–22) y, en las 15 categorías de residencia declarada, ocho cuentan con menos de cinco participantes, por lo que sus prevalencias son solo indicativas. El instrumento fue validado por prueba piloto, sin juicio de expertos formal.
Con 42 eventos y siete parámetros, el modelo multivariable tiene potencia limitada para detectar efectos pequeños o moderados; los intervalos amplios reflejan incertidumbre, no ausencia de efecto. La localidad, la variable con mayor asociación bivariada, no pudo incorporarse al modelo por separación completa, por lo que las conclusiones sobre la dimensión territorial son bivariadas.
Solo seis participantes reportaron alguna aplicación medicinal, lo que impide cualquier análisis etnofarmacológico. El ICE es un instrumento construido ad hoc, sin validación psicométrica, y los ítems sobre disposición a participar son susceptibles de sesgo de deseabilidad social.
CONCLUSIONES
El conocimiento sobre el tomate silvestre (Solanum spp.) en las cuencas del Rímac, Chillón y Lurín persiste como memoria residual: el 42% de los adultos consultados reconoce la especie, pero solo el 21% la ha usado alguna vez y más de la mitad de los portadores no ha transmitido su saber, en una muestra con 89% de arraigo territorial superior a diez años. Este estudio establece la primera línea de base etnobotánica sobre la especie en Lima Metropolitana y permite cuantificar, para estudios longitudinales futuros, un proceso de erosión que ya está en curso.
El reconocimiento no se asoció con el sexo, la edad, la ocupación ni el tiempo de residencia, y sí con la localidad y la cuenca (Rímac 62,1%; Lurín 56,7%; Chillón 17,1%), patrón compatible con la noción de conocimiento territorializado, aunque sustentado en evidencia bivariada. La profundidad del saber, medida con el ICE, sigue una ordenación distinta de la prevalencia: hay localidades donde muchos reconocen la especie con un repertorio superficial (Antioquía) y localidades donde pocos la reconocen con el repertorio completo (Huaros). Ambos regímenes de erosión requieren intervenciones diferentes: reactivación de la práctica en el primero; registro urgente y transmisión dirigida en el segundo.
La comunidad identifica como amenaza principal la falta de interés (75%), muy por encima del cambio climático, la contaminación o la expansión urbana, y el 79% manifiesta disposición a participar en programas de conservación, con la capacitación práctica como acción más demandada. La conservación del tomate silvestre en las cuencas de Lima exige, por tanto, articular la protección del recurso genético con la revitalización cultural del saber, aprovechando un capital social comunitario todavía disponible y transversal al género.
Las limitaciones del estudio delimitan una agenda de investigación. En primer lugar, la determinación taxonómica formal, colecta, herborización y depósito en un herbario de referencia, es el paso ineludible para vincular los saberes documentados con especies concretas y con las prioridades de conservación ex situ e in situ. En segundo lugar, se requiere un diseño con al menos 20 portadores por localidad y un muestreo probabilístico estratifi-cado por cuenca para verificar la hipótesis de los dos regímenes de erosión y estimar la asociación territorial con un modelo ajustado. En tercer lugar, un seguimiento longitudinal de las mismas localidades permitiría estimar la velocidad de la erosión y evaluar el efecto de intervenciones de investigación-acción participativa. Finalmente, el ICE debería someterse a validación psicométrica y compararse con los índices de importancia cultural de uso corriente antes de emplearse en otros contextos.
AGRADECIMIENTOS
Los autores agradecen al Dr. Jacinto Joaquín Vértiz Osores, investigador principal del proyecto matriz de evaluación de la diversidad genética del tomate silvestre en las cuencas de Lima (autorización SERFOR · Resolución Directoral 000148-2025-DGGSPFFS-DGSPF · Código de Autorización AUT-IFL-2025-076), por el contexto institucional que enmarca el componente etnobotánico aquí reportado. Los autores expresan también su gratitud a las autoridades comunales que participaron voluntariamente en el estudio.
REFERENCIAS BIBLIOGRÁFICAS
Albuquerque, U. P., de Lucena, R. F. P., Cruz da Cunha, L. V. F., & Alves, R. R. N. (Eds.). (2019). Methods and techniques in ethnobiology and ethnoecology (2nd ed.). Humana Press. https://doi.org/10.1007/978-1-4939-8919-5
Alexiades, M. N. (Ed.). (1996). Selected guidelines for ethnobotanical research: A field manual (Advances in Economic Botany, Vol. 10). The New York Botanical Garden Press.
Alrhmoun, M., Sulaiman, N., Villa, S., Fontefrancesco, M. F., & Pieroni, A. (2025). The Biella paradox: The resilience of plant foraging in a post-industrial pre-alpine area of Northern Italy. Botanical Studies, 66, 38. https://doi.org/10.1186/s40529-025-00486-8
Aswani, S., Lemahieu, A., & Sauer, W. H. H. (2018). Global trends of local ecological knowledge and future implications. PLOS ONE, 13(4), e0195440. https://doi.org/10.1371/journal.pone.0195440
Ayenew, T., Melkamu, Y., Masresha, G., Tadesse, D., Misganaw, W., Asrie, B., & Enyew, A. (2026). Indigenous knowledge of traditional medicinal plants in Gondar City Administration, Amhara National Regional State, northwest Ethiopia. Tropical Medicine and Health, 54(1). https://doi.org/10.1186/s41182-026-00965-z
Benjamini, Y., & Hochberg, Y. (1995). Controlling the false discovery rate: A practical and powerful approach to multiple testing. Journal of the Royal Statistical Society: Series B, 57(1), 289–300. https://doi.org/10.1111/j.2517-6161.1995.tb02031.x
Brandt, R., Mathez-Stiefel, S.-L., Lachmuth, S., Hensen, I., & Rist, S. (2013). Knowledge and valuation of Andean agroforestry species: The role of sex, age, and migration among members of a rural community in Bolivia. Journal of Ethnobiology and Ethnomedicine, 9, 83. https://doi.org/10.1186/1746-4269-9-83
Bussmann, R. W., & Sharon, D. (2006). Traditional medicinal plant use in Northern Peru: Tracking two thousand years of healing culture. Journal of Ethnobiology and Ethnomedicine, 2, 47. https://doi.org/10.1186/1746-4269-2-47
Chevalier, J. M., & Buckles, D. J. (2019). Participatory action research: Theory and methods for engaged inquiry (2nd ed.). Routledge. https://doi.org/10.4324/9781351033268
Convenio sobre la Diversidad Biológica. (2022). Marco Mundial de Biodiversidad de Kunming-Montreal (Decisión CBD/COP/DEC/15/4).
Corroto, F., Rascón, J., Barboza, E., & Macía, M. J. (2021). Medicinal plants for rich people vs. medicinal plants for poor people: A case study from the Peruvian Andes. Plants, 10(8), 1634. https://doi.org/10.3390/plants10081634
Cramér, H. (1946). Mathematical methods of statistics. Princeton University Press.
da Silva, W. F., Centeno-Alvarado, D., da Silva, T. C., & Ramos, M. A. (2026). Forest degradation as a potential driver of shifting baseline syndrome in Northeastern Brazil: A case study. Environmental Management, 76(5). https://doi.org/10.1007/s00267-026-02456-7
de Feo, V. (2003). Ethnomedical field study in northern Peruvian Andes with particular reference to divination practices. Journal of Ethnopharmacology, 85(2–3), 243–256. https://doi.org/10.1016/S0378-8741(03)00017-5
Dempewolf, H., Baute, G., Anderson, J., Kilian, B., Smith, C., & Guarino, L. (2017). Past and future use of wild relatives in crop breeding. Crop Science, 57(3), 1070–1082. https://doi.org/10.2135/cropsci2016.10.0885
Dos Santos, P. V. C., Ferreira, F. S., & Brito, S. V. (2025). The influence of socioeconomic factors on the knowledge of reptiles and mammals in the Lençóis Maranhenses National Park, Northeast Brazil. Journal of Ethnobiology and Ethnomedicine, 21(1), 44. https://doi.org/10.1186/s13002-025-00780-6
Dunn, O. J. (1964). Multiple comparisons using rank sums. Technometrics, 6(3), 241–252. https://doi.org/10.1080/00401706.1964.10490181
FAO. (2019). The state of the world’s biodiversity for food and agriculture (J. Bélanger & D. Pilling, Eds.). FAO Commission on Genetic Resources for Food and Agriculture.
Firth, D. (1993). Bias reduction of maximum likelihood estimates. Biometrika, 80(1), 27–38. https://doi.org/10.1093/biomet/80.1.27
Friedman, M. (2006). Potato glycoalkaloids and metabolites: Roles in the plant and in the diet. Journal of Agricultural and Food Chemistry, 54(23), 8655–8681. https://doi.org/10.1021/jf061471t
Gafforov, Y., Rašeta, M., Zafar, M., Makhkamov, T., Yarasheva, M., Chen, J.-J., Zhumagul, M., Wang, M., Ghosh, S., Abbasi, A. M., Yuldashev, A., Mamarakhimov, O., Alosaimi, A. A., Berdieva, D., & Rapior, S. (2024). Exploring biodiversity and ethnobotanical significance of Solanum species in Uzbekistan: Unveiling the cultural wealth and ethnopharmacological uses. Frontiers in Pharmacology, 14, 1287793. https://doi.org/10.3389/fphar.2023.1287793
Gavin, M. C., McCarter, J., Mead, A., Berkes, F., Stepp, J. R., Peterson, D., & Tang, R. (2015). Defining biocultural approaches to conservation. Trends in Ecology & Evolution, 30(3), 140–145. https://doi.org/10.1016/j.tree.2014.12.005
Grimaldi, P. A., & Ladio, A. (2025). Pollination as a biocultural process: Integrating local ecological knowledge of family farmers in northern Argentinian Patagonia for inclusive conservation. Journal of Ethnobiology and Ethnomedicine, 21(1), 83. https://doi.org/10.1186/s13002-025-00821-0
Heinrich, M., Ankli, A., Frei, B., Weimann, C., & Sticher, O. (1998). Medicinal plants in Mexico: Healers’ consensus and cultural importance. Social Science & Medicine, 47(11), 1859–1871. https://doi.org/10.1016/S0277-9536(98)00181-6
Heinze, G., & Schemper, M. (2002). A solution to the problem of separation in logistic regression. Statistics in Medicine, 21(16), 2409–2419. https://doi.org/10.1002/sim.1047
International Society of Ethnobiology. (2006). ISE code of ethics (with 2008 additions). https://www.ethnobiology.net/what-we-do/core-programs/ise-ethics-program/code-of-ethics/
Jarić, I., Fernández-Llamazares, Á., Molnár, Z., Arbieu, U., Canavan, S., Correia, R. A., Essl, F., … Jeschke, J. M. (2025). Cultural integration of invasive species. npj Biodiversity, 4(1), 25. https://doi.org/10.1038/s44185-025-00097-3
Kruskal, W. H., & Wallis, W. A. (1952). Use of ranks in one-criterion variance analysis. Journal of the American Statistical Association, 47(260), 583–621. https://doi.org/10.1080/01621459.1952.10483441
Kujawska, M., & Albán-Castillo, J. (2024). Wild-grown medicinal plants used by the Asháninka people from the Tambo River, Peruvian Amazonia. Journal of Ethnopharmacology, 337, 118919. https://doi.org/10.1016/j.jep.2024.118919
Lê, S., Josse, J., & Husson, F. (2008). FactoMineR: An R package for multivariate analysis. Journal of Statistical Software, 25(1), 1–18. https://doi.org/10.18637/jss.v025.i01
Leonti, M. (2011). The future is written: Impact of scripts on the cognition, selection, knowledge and transmission of medicinal plant use and its implications for ethnobotany and ethnopharmacology. Journal of Ethnopharmacology, 134(3), 542–555. https://doi.org/10.1016/j.jep.2011.01.017
Mathez-Stiefel, S.-L., & Vandebroek, I. (2012). Distribution and transmission of medicinal plant knowledge in the Andean highlands: A case study from Peru and Bolivia. Evidence-Based Complementary and Alternative Medicine, 2012, 959285. https://doi.org/10.1155/2012/959285
Ministerio del Ambiente. (2021). Línea de base de la diversidad del tomate peruano con fines de bioseguridad. Dirección General de Diversidad Biológica, MINAM.
Ministerio del Ambiente. (2024). Estrategia Nacional de Diversidad Biológica al 2050 (Decreto Supremo N.° 008-2024-MINAM). Diario Oficial El Peruano.
Molares, S., & Ladio, A. (2009). Ethnobotanical review of the Mapuche medicinal flora: Use patterns on a regional scale. Journal of Ethnopharmacology, 122(2), 251–260. https://doi.org/10.1016/j.jep.2009.01.003
Monigatti, M., Bussmann, R. W., & Weckerle, C. S. (2013). Medicinal plant use in two Andean communities located at different altitudes in the Bolívar Province, Peru. Journal of Ethnopharmacology, 145(2), 450–464. https://doi.org/10.1016/j.jep.2012.10.066
Naciones Unidas. (2015). Transformar nuestro mundo: La Agenda 2030 para el Desarrollo Sostenible (A/RES/70/1). Asamblea General de las Naciones Unidas.
Ostrom, E. (1990). Governing the commons: The evolution of institutions for collective action. Cambridge University Press. https://doi.org/10.1017/CBO9780511807763
Peduzzi, P., Concato, J., Kemper, E., Holford, T. R., & Feinstein, A. R. (1996). A simulation study of the number of events per variable in logistic regression analysis. Journal of Clinical Epidemiology, 49(12), 1373–1379. https://doi.org/10.1016/S0895-4356(96)00236-3
Peralta, I. E., Spooner, D. M., & Knapp, S. (2008). Taxonomy of wild tomatoes and their relatives (Solanum sect. Lycopersicoides, sect. Juglandifolia, sect. Lycopersicon; Solanaceae). Systematic Botany Monographs, 84, 1–186.
Perú, Congreso de la República. (1997). Ley N.° 26839, Ley sobre la conservación y aprovechamiento sostenible de la diversidad biológica. Diario Oficial El Peruano.
Perú, Congreso de la República. (2002). Ley N.° 27811, Ley que establece el régimen de protección de los conocimientos colectivos de los pueblos indígenas vinculados a los recursos biológicos. Diario Oficial El Peruano.
Prado-Elias, A., Ludwinsky, R. H., Kotowski, M., Zabin, D. A., Menolli, N., Jr., Trierveiler-Pereira, L., & Hanazaki, N. (2025). Ethnomycological knowledge of Slavic immigrant descendants in southern Brazil. Journal of Ethnobiology and Ethnomedicine, 22(1), 3. https://doi.org/10.1186/s13002-025-00840-x
Ramírez-Ojeda, G., Peralta, I. E., Rodríguez-Guzmán, E., Sahagún-Castellanos, J., Chávez-Servia, J. L., Medina-Hinostroza, T. C., Rijalba-Vela, J. R., Vásquez-Núñez, L. P., & Rodríguez-Pérez, J. E. (2021). Edaphoclimatic descriptors of wild tomato species (Solanum sect. Lycopersicon) and closely related species (Solanum sect. Juglandifolia and sect. Lycopersicoides) in South America. Frontiers in Genetics, 12, 748979. https://doi.org/10.3389/fgene.2021.748979
Reyes-García, V., Guèze, M., Luz, A. C., Paneque-Gálvez, J., Macía, M. J., Orta-Martínez, M., Pino, J., & Rubio-Campillo, X. (2013). Evidence of traditional knowledge loss among a contemporary indigenous society. Evolution and Human Behavior, 34(4), 249–257. https://doi.org/10.1016/j.evolhumbehav.2013.03.002
Rico Lenta, C., & Ladio, A. (2026). Cascading socio-environmental risks in Northern Patagonia: A locally anchored assessment from family farming systems. Environmental Management, 76(9), 306. https://doi.org/10.1007/s00267-026-02619-6
Rivera Ramírez, D. B., Pérez-Hernández, C. X., Arellanes-Cancino, Y., & Mendoza-Cuenca, L. (2025). Oral history as a citizen science tool to understand biodiversity loss and environmental changes: On firefly extirpation in Morelia, Michoacán, Mexico. PeerJ, 13, e19413. https://doi.org/10.7717/peerj.19413
Särkinen, T., Baden, M., Gonzáles, P., Cueva, M., Giacomin, L. L., Spooner, D. M., Simon, R., Juárez, H., Nina, P., Molina, J., & Knapp, S. (2015). Listado anotado de Solanum L. (Solanaceae) en el Perú. Revista Peruana de Biología, 22(1), 3–62. https://doi.org/10.15381/rpb.v22i1.11121
Silva, W., Seminario, J. F., Seminario Ordoñez, G. I., Seminario-Cunya, A., Montoya-Quino, J. F., & Sotomayor, D. A. (2025). A review of two thousand years of traditional medicine in Cajamarca, Peru: Historical use of medicinal plants. Ethnobotany Research and Applications, 32, 16. https://doi.org/10.32859/era.32.16.1-23
Swiderska, K. L., Argumedo, A., Stenner, T., Wekesa, C., Ndalilo, L., Lepcha, E. T., Rastogi, A., Song, Y., Li, G., Zhang, Y., & Song, X. (2025). Biocultural well-being: Indigenous Peoples’ values for conservation and equity. Ecology and Society, 30(4), 26. https://doi.org/10.5751/ES-16515-300426
Tang, R., & Gavin, M. C. (2016). A classification of threats to traditional ecological knowledge and conservation responses. Conservation and Society, 14(1), 57–70.
Toledo, V. M., & Barrera-Bassols, N. (2008). La memoria biocultural: La importancia ecológica de las sabidurías tradicionales. Icaria Edit.
Trotter, R. T., & Logan, M. H. (1986). Informant consensus: A new approach for identifying potentially effective medicinal plants. In N. L. Etkin (Ed.), Plants in indigenous medicine and diet: Biobehavioral approaches (pp. 91–112). Redgrave Publishing.
van Zonneveld, M., Khoury, C. K., Herforth, A., Vogliano, C., Fowler, C., Gora, S., Azevedo, V., Krishnan, S., Waqainabete, L. M., N’Danikou, S., & Schranz, M. E. (2026). Reversing vegetable biodiversity loss to diversify diets. Proceedings of the National Academy of Sciences, 123, e2532063123. https://doi.org/10.1073/pnas.2532063123
Vilchez, D., Sotomayor, D. A., & Zorrilla, C. (2019). Prioridades para la conservación ex situ de las especies silvestres de tomate del Perú (Solanum L. sect. Lycopersicum (Mill.) Wettst.). Ecología Aplicada, 18(2), 171–183. https://doi.org/10.21704/rea.v18i2.1335
White, J. R., Zarrillo, S., Monteros Altamirano, Á., Peñafiel Cevallos, M., Tanguila, R., & Cuéllar, A. M. (2026). Refocusing the study of human-plant relations to the genus scale: Indigenous selection pressures in Xanthosoma. Journal of Ethnobiology and Ethnomedicine, 22(1), 86. https://doi.org/10.1186/s13002-026-00919-z