 |
INTRODUCCIÓN
Diversidad morfológica y caracterización fenotípica de ecotipos de mora (Rubus spp.) en los Andes ecuatorianos (2037-2620 msnm)
Morphological diversity and phenotypic characterization of Rubus ecotypes in the Ecuadorian Andes (2037-2620 masl)
Rubén Darío Saltos-Espín1; Víctor Hugo González-Rivera2*; Martha Magdalena González-Rivera3;
Olga Isabel González-Rivera4
1 Ministerio de Agricultura y Ganadería. Ciudad Guaranda, Provincia Bolívar, Ecuador.
2 Facultad de Ciencias Agrarias. Carrera de Agropecuaria. Universidad Estatal Península de Santa Elena. Ciudad La Libertad, Santa Elena, Ecuador.
3 Secretaría de Desarrollo Económico Productivo – GADPB, Provincia Bolívar, Ecuador.
4 Rashellbella Corporation “CORDEIR,” Ciudad Guaranda, Provincia Bolívar, Ecuador.
* Autor corresponsal: vicgo_1811@hotmail.com, vgonzalezr@upse.edu.ec (V. H. González-Rivera).
ORCID de los autores:
R. D. Saltos-Espín: https://orcid.org/0000-0002-8480-4772 V. H. González-Rivera: https://orcid.org/0000-0001-5195-9631
M. M. González-Rivera: https://orcid.org/0000-0003-3211-4988 O. I. González Rivera: https://orcid.org/0009-0009-9313-7797
RESUMEN
La mora (Rubus sp.) es un cultivo frutal de gran importancia socioeconómica en Ecuador. La escasa información sobre la diversidad morfológica de los ecotipos locales limita el desarrollo de programas de mejoramiento genético y conservación. Con el fin de caracterizar su diversidad morfológica, se registraron in situ 16 ecotipos del género Rubus en tres localidades del cantón Guaranda, provincia de Bolívar (2037–2620 msnm), pertenecientes a las especies R. glaucus, R. niveus, R. floribundus Kunth, R. ulmifolius Schott y R. rosifolius Sm. Se evaluaron 18 descriptores cualitativos mediante Análisis de Correspondencias Múltiples (ACM) y el método de Ward con distancia euclídea. El análisis discriminante identificó siete descriptores con el mayor poder de diferenciación (CV > 35%): forma de la hoja (CV = 57,75%), hábito de producción (CV = 36,63%), forma del ápice (CV = 36,41%), color de la corola (CV = 36,41%), forma del margen foliar (CV = 35,40%), vellosidades en las hojas (CV = 35,93%) y forma del fruto maduro (CV = 36,40%). El ACM explicó el 82,61% de la variabilidad total en dos dimensiones (D1 = 46,91%; D2 = 35,71%). El análisis de conglomerados conformó tres grupos: el Conglomerado 1 agrupó ecotipos de R. glaucus cultivados, el Conglomerado 2 reunió las especies R. floribundus Kunth y R. niveus Thunb., y el Conglomerado 3 incluyó R. ulmifolius Schott y R. rosifolius Sm. Estos resultados aportan una base morfológica preliminar y de bajo costo para orientar la selección de progenitores en programas de conservación y mejoramiento genético de Rubus en los Andes ecuatorianos.
Palabras clave: descriptores cualitativos; descriptores morfológicos; ecotipos; germoplasma andino; Rubus glaucus
ABSTRACT
The blackberry (Rubus sp.) is a fruit crop of great socioeconomic importance in Ecuador. The limited information on the morphological diversity of local ecotypes hinders the development of genetic improvement and conservation programs. To characterize this diversity, sixteen ecotypes of the genus Rubus were recorded in situ at three sites in the Guaranda canton, Bolívar province (2037–2620 masl), belonging to the species R. glaucus, R. niveus, R. floribundus Kunth, R. ulmifolius Schott, and R. rosifolius Sm. Eighteen qualitative descriptors were evaluated using Multiple Correspondence Analysis (MCA) and Ward’s method with Euclidean distance. Discriminant analysis identified seven descriptors with the highest discriminatory power (CV > 35%): leaf shape (CV = 57.75%), fruiting habit (CV = 36.63%), apex shape (CV = 36.41%), corolla color (CV = 36.41%), leaf margin shape (CV = 35.40%), leaf pubescence (CV = 35.93%), and mature fruit shape (CV = 36.40%). MCA explained 82.61% of the total variability in two dimensions (D1 = 46.91%, α = 0.925; D2 = 35.71%, α = 0.880). The cluster analysis formed three groups: Cluster 1 grouped cultivated ecotypes of R. glaucus, Cluster 2 grouped the species R. floribundus Kunth and R. niveus Thunb., and Cluster 3 included R. ulmifolius Schott and R. rosifolius Sm. These findings provide a low-cost, preliminary morphological basis for guiding parent selection in Rubus conservation and breeding programs in the Ecuadorian Andes.
Keywords: qualitative descriptors; morphological descriptors; ecotypes; Andean germplasm; Rubus glaucus
Recibido: 12-06-2026.
Aceptado: 02-10-2026.
|
INTRODUCCIÓN
El género Rubus es altamente diverso y taxonómicamente complejo, con una distribución mundial (Sochor et al., 2018a; Iza et al., 2020). Algunas especies, como R. glaucus Benth., son originarias de las zonas altoandinas de América (Saltos et al., 2020). Este género incluye miles de especies descritas y numerosos taxones infragenéricos, y se caracteriza por una alta heterocigosidad y niveles de ploidía que varían desde diploides hasta dodecaploides (Kurtto et al., 2010; Marulanda & Márquez, 2001); la mayoría de las especies son apomícticas, contiene alrededor de 863 especies en todo el mundo (Chen et al., 2026).
Las especies de Rubus son regionalmente importantes como cultivos comerciales: R. glaucus, Benth., en los Andes de América del Sur; R. armeniacus Focke (R. procerus P. J. Muell.) en su Europa nativa o como especie naturalizada en América del Sur; R. phoenicolasius Maxim., R. coreanus Miq., y R. parvifolius L., en Asia; y R. chamaemorus L. y R. arcticus L., nativas de los confines del hemisferio norte (Finn, 1999; Finn & Hancock, 2008). Estas especies presentan amplia adaptación a diversas condiciones edafoclimáticas (Clark et al., 2007).
La taxonomía de Rubus ha sido históricamente difícil debido a su amplia diversidad morfológica y las características superpuestas, y los procesos de apomixis, poliploidización e hibridación (Sochor et al., 2022b). Las especies de Rubus exhiben una tremenda diversidad, con plantas que van desde leñosas hasta semileñosas, arbustos o subarbustos rastreros, erectos o trepadores hasta hierbas enanas rastreras perennes. Las hojas varían desde simples hasta compuestas palmeadas o pinnadas con un número que generalmente oscila entre 3 y 11, y ocasionalmente hasta 15 folíolos (Gao et al., 2023).
La mora es un cultivo de alto valor comercial debido a la calidad de sus frutos, su precocidad productiva y valor nutricional, características que permiten un rápido retorno económico y una creciente demanda en los mercados (Alice & Campbell, 1999; Huang & Hu, 2009); la producción mundial se concentra principalmente en México, Estados Unidos y Serbia; México lidera con alrededor del 35% – 40% de la producción mundial (FAOSTAT, 2023).
En la región andina, Rubus glaucus Benth. (Mora de Castilla) es la especie de mayor importancia socioeconómica. En Ecuador, la producción de mora sustenta a cerca de 15 mil pequeños y medianos productores, con una superficie cultivada de 5294 hectáreas (Guerrero, 2023). A pesar de esta importancia, la base genética comercial es estrecha, limitándose a cultivares como “Castilla”, “Colombiana”, “Brazos” e “INIAP Andimora 2013” (Iza et al., 2020).
Ecuador alberga una vasta riqueza fitogenética del género Rubus con 24 especies registradas distribuidas en tres subgéneros: Idaeobatus (frambuesas), Rubus (antiguamente Eubatus, zarzamoras) y Orobatus (endémico andino) que habitan en ecosistemas perturbados, bordes de bosque nublado y zonas de páramo (Romoleroux, 1996; Espinel & Romoleroux, 2020, 2021). Entre las especies recientemente registradas destacan Rubus longistipularis Espinel-Ortiz & Romol., arbusto trepador propio de los bosques montanos del Chocó Andino, y Rubus maquipucunensis Espinel-Ortiz & Romol., liana de los bosques lluviosos de Pichincha y Santo Domingo de los Tsáchilas, lo que evidencia que la diversidad del género en Ecuador continúa siendo subestimada (Espinel & Romoleroux, 2021).
En Ecuador, el género Rubus comprende tanto especies silvestres como cultivadas, entre las que se registran R. floribundus Kunth, R. adenotrichos Schltdl., R. roseus Poir., R. glaucus Benth., R. niveus Thunb. y R. boliviensis Focke, entre otras (Romoleroux, 1996; Espinel-Ortiz et al., 2024). De estas, R. glaucus Benth es la de mayor importancia comercial y la de mayor aceptación por parte de los agricultores, la industria y los consumidores (Saltos et al., 2020; Iza et al., 2020).
Estudios genéticos previos, desarrollados por Simbaña (2020) mediante el uso de 20 marcadores microsatélites en 135 accesiones de Rubus spp. recolectadas en zonas altoandinas del Ecuador, revelaron un alto índice de polimorfismo (0,624) y una heterocigosidad promedio de 0,434. Estos indicadores, significativamente superiores en los materiales silvestres respecto a los cultivares comerciales, subrayan la existencia de una amplia variabilidad genética en el germoplasma local.
A nivel regional, investigaciones en Colombia y Brasil han demostrado que la caracterización morfológica es una herramienta eficaz y de bajo costo para establecer la identidad de materiales locales y detectar fuentes de resistencia a enfermedades o ciertas características deseables para mejoramiento genético (Zamorano et al., 2007).
En Ecuador, a pesar de décadas de producción, la investigación sistemática sobre las características morfológicas y agronómicas de la mora sigue siendo limitada. Esta brecha de conocimiento obstaculiza la selección de materiales promisorios para el reemplazo de variedades tradicionales o la identificación de genes clave para el fitome-joramiento. Específicamente, no existe una caracterización morfológica sistemática de los ecotipos locales de Rubus que oriente los programas de mejoramiento, y este vacío es particularmente evidente en la zona centro-andina del Ecuador (provincia de Bolívar), donde coexisten cultivares comerciales, materiales silvestres nativos y especies naturalizadas. En este contexto, la caracterización morfológica constituye una herramienta preliminar, de bajo costo y de fácil aplicación en campo, que permite priorizar los materiales que ameritan posteriormente estudios moleculares (Zamorano et al., 2007; Simbaña, 2020). El presente estudio tuvo como objetivo caracterizar morfológicamente los ecotipos del género Rubus spp. provenientes de tres sectores del cantón Guaranda, provincia de Bolívar, mediante descriptores cualitativos de alto poder discriminante, con el fin de identificar variabilidad fenotípica útil para programas de conservación y fitomejoramiento.
METODOLOGÍA
2.1. Área de estudio
El estudio se desarrolló entre los meses de marzo y agosto de 2025 en tres localidades pertenecientes al cantón Guaranda, provincia de Bolívar-Ecuador, ubicada en la zona centro de la región Interandina del Ecuador (Saltos et al., 2020). Las características geográficas y climáticas de los sitios de muestreo se detallan en la Tabla 1.
2.2. Material de estudio
Se evaluaron 16 ecotipos del género Rubus spp., pertenecientes a tres localidades del cantón Guaranda: Illuvi, Tamboreal y Guantug Cruz (Tabla 2). La determinación taxonómica se realizó con base en la clave de especies de Rubus incluida en la serie Flora del Ecuador (Romoleroux, 1996). Tras la identificación, los 16 registros se agruparon en siete taxones.
2.3. Caracterización morfológica
Los caracteres utilizados en los análisis filoge-néticos se dividen generalmente en dos clases conceptuales: “morfológicos”, esencialmente equi-valentes a características no moleculares, como la morfología de los órganos, y “moleculares”, derivados de datos genéticos, como secuencias de ADN. Las características morfológicas suelen ser la manifestación de numerosos genes interrela-cionados (Simpson, 2019).
Para el proceso de caracterización de los ecotipos, se seleccionaron 10 plantas en producción, selec-cionadas por muestreo aleatorio simple para cada ecotipo dentro de cada localidad (numeración de las plantas en producción y sorteo, de modo que todas tuvieron la misma probabilidad de ser elegidas), excluyendo aquellas con daños fito-sanitarios evidentes. En cada planta se realizaron tres mediciones independientes por descriptor. Para consolidar las mediciones de cada ecotipo en un único valor por descriptor cualitativo, se empleó la moda estadística como medida de tendencia central, criterio apropiado para variables categóricas (Rivera et al., 2023). Los valores modales obtenidos constituyeron la matriz de datos con la que se realizó el Análisis de Correspondencias Múltiples (ACM) y el análisis de conglomerados jerárquico.
En total, se evaluaron 18 variables cualitativas, adaptadas con base en los descriptores propuestos para la caracterización de materiales del género Rubus (Espinosa et al., 2016).
Se priorizaron descriptores cualitativos por tratarse de caracteres multiestado de expresión discreta, de registro visual directo y, en general, menos influenciados por el ambiente y por el estado fenológico, lo que permite evaluar ecotipos a bajo costo y de forma reproducible entre evaluadores. No se incluyeron descriptores cuantitativos (por ejemplo, peso del fruto, longitud de entrenudos) porque, al tratarse de un muestreo in situ en tres localidades con distinta altitud, edad de plantación y manejo, su expresión estaría confundida con el ambiente y su evaluación requiere repeticiones en un ambiente común (jardín de comparación), lo cual excede el alcance de esta fase exploratoria; estos caracteres se abordarán en una etapa posterior. Los descriptores cualitativos evaluados se describen en la Tabla 3 con el propósito de facilitar su interpretación y estandarización.
Tabla 1
Características geográficas y climáticas de las zonas de estudio
|
Cantón |
Parroquia |
Localidad |
Latitud (UTM) |
Longitud (UTM) |
Precipitación media anual (mm) |
Temperatura media (°C) |
|
Guaranda |
Guanujo |
Illuvi |
9833536 |
709364 |
750 a 1 750 |
12 a 16 |
|
Guaranda |
Salinas |
Tamboreal |
9832319 |
707371 |
||
|
Guaranda |
Guanujo |
Guantug Cruz |
9831850 |
713396 |
Fuente: Gobierno Autónomo Descentralizado de la Provincia de Bolívar (2015). Coordenadas UTM WGS84 Zona 17 S.
Tabla 2
Ecotipos del género Rubus spp. en estudio
|
Sector |
Altura |
Zona de vida |
Nombre común |
Nombre Científico |
Estado biológico |
|
Tamboreal |
2260 a 2620 msnm |
Bosque Húmedo Montano Bajo (bh-MB) |
Mora blanca |
R. niveus Thunb. |
Naturalizada |
|
Mora criolla |
R. floribundus Kunth |
Silvestre nativa |
|||
|
Mora de Castilla |
R. glaucus Benth. |
Cultivado |
|||
|
Mora zarza |
Rubus ulmifolius Schott |
Naturalizada |
|||
|
Illuvi |
2360 a 2375 msnm |
Bosque Húmedo Montano Bajo (bh-MB) |
Mora blanca |
R. niveus Thunb. |
Naturalizada |
|
Mora criolla |
R. floribundus Kunth |
Silvestre nativa |
|||
|
Mora fresa |
R. rosifolius Sm. |
Naturalizada |
|||
|
Mora de Castilla |
R. glaucus Benth. |
Cultivado |
|||
|
Mora colombiana sin espino |
R. glaucus Benth. |
Cultivado |
|||
|
Mora colombiana con espino |
R. glaucus Benth. |
Cultivado |
|||
|
Mora zarza |
Rubus ulmifolius Schott |
Naturalizada |
|||
|
Guantug Cruz |
2037 a 2568 msnm |
Bosque Húmedo Montano Bajo (bh-MB) |
Mora criolla |
R. floribundus Kunth |
Silvestre nativa |
|
Mora de Castilla |
R. glaucus Benth. |
Cultivado |
|||
|
Mora colombiana sin espino |
R. glaucus Benth. |
Cultivado |
|||
|
Mora colombiana con espino |
R. glaucus Benth. |
Cultivado |
|||
|
Mora zarza |
Rubus ulmifolius Schott |
Naturalizada |
Nota: Las 16 entradas de campo fueron agrupadas taxonómicamente en 7 taxones para el análisis multivariado.
Tabla 3
Categorías de las variables cualitativas evaluadas
|
Variable |
Categorías (Descriptor) |
|
Hábito de crecimiento |
Trepadores / Rastreros / Semierecto |
|
Hábito de producción |
1/3 de la rama / 2/3 de la rama / 3/3 de la rama |
|
Cerosidad del tallo |
Ausente / Presente |
|
Forma de acúleos en el tallo |
Ausente / Curva |
|
Vellosidades en las hojas |
Ausente / Presente |
|
Forma de acúleos en las hojas |
Ausente / Recta / Curva |
|
Forma de la hoja |
Trifoliada / Palmeada / Trifoliada y palmeada / Imparipinnada |
|
Forma del margen de la hoja |
Aserrado / Biaserrado |
|
Forma de base de los foliolos |
Obtusa / Subcordada / Inequilátera |
|
Forma del ápice de la hoja |
Acuminada / Emarginado |
|
Forma del foliolo |
Oblongo-elíptico / Ovalado-lanceolado |
|
Puntos verde-oscuro en el envés |
Ausente / Presente |
|
Color del envés de la hoja |
Verde / Blanco |
|
Color de la corola |
Blanco / Lila |
|
Forma del pétalo |
Redondeado / Lanceolado |
|
Color del cáliz |
Verde / Otro |
|
Color del fruto |
Morado oscuro / Rojo |
|
Forma del fruto maduro |
Redondeada / Cónica |
Fuente: Espinosa et al. (2016).
2.4. Análisis estadístico
A partir de los datos tabulados se elaboraron medidas de tendencia central y de variabilidad (desviación estándar, varianza y coeficiente de variación), lo que permitió identificar la proporción de cada grupo de ecotipos para cada variable. Los descriptores con CV > 25% fueron considerados de alto poder discriminante.
Para explorar la relación entre variables categó-ricas, se aplicó el Análisis de Correspondencias Múltiples (ACM). Este método resulta adecuado cuando se analizan simultáneamente múltiples variables cualitativas, permitiendo identificar patrones de asociación entre categorías y la estructura subyacente de los datos (Abdi & Valentin, 2007; Greenacre, 2017).
Adicionalmente, se realizó un análisis de clasificación jerárquica con el fin de agrupar los ecotipos en función de su similitud morfológica. Para ello, se utilizó la distancia euclidiana como medida de disimilitud y el método de Ward (Ward, 1963) como criterio de agrupamiento, el cual minimiza la varianza intragrupo y maximiza la varianza intergrupo, generando conglomerados homogéneos y bien diferenciados. La calidad del agrupamiento se validó mediante el coeficiente de correlación cofenética (CCC), que expresa la concordancia entre la matriz de distancias euclídeas original y la matriz implícita en el dendrograma; se consideraron indicativos de un buen ajuste los valores ≥ 0,85 (Sokal & Rohlf, 1962). El índice de Jaccard (Jaccard, 1901), medida de similitud definida para datos binarios de presencia/ausencia, no se incorporó en esta fase, su aplicación exige transformar la matriz modal multiestado (dos a cuatro categorías por descriptor) en variables binarias y, con solo siete taxones, su aporte sería limitado; por ello se plantea como análisis de validación comple-mentario para estudios con un mayor número de accesiones.
El procesamiento de los datos fue desarrollado en el programa estadístico Statistical Package for the Social Sciences-SPSS v. 27 (Rivera et al., 2023).
RESULTADOS Y DISCUSIÓN
3.1. Características morfológicas de los ecotipos de Rubus spp.
La Tabla 4 presenta resultados de la caracteriza-ción morfológica. Los descriptores con mayor coeficiente de variación (CV > 25%) fueron: forma de la hoja (CV 57,75%), hábito de producción (CV 36,63%), vellosidades en las hojas (CV 35,93%), forma del margen de la hoja (CV 35,40%), cerosidad del tallo (CV 31,94%), forma del ápice de la hoja (CV 36,41%), forma del pétalo (CV 32,08%), y color de la corola (CV 36,41%). Dos descriptores mostraron varianza nula: puntos de color verde-oscuro en el envés de la hoja y color del cáliz, por lo que fueron excluidos del análisis multivariado al carecer de capacidad discriminante; sin embargo, se mantuvieron como referencia taxonómica. Esta variabilidad diferencial es característica del género Rubus, cuya amplia diversidad fenotípica responde tanto a la complejidad genética del grupo marcada por altos niveles de poliploidía, hibridación y apomixis (Huang et al., 2023), como a la influencia de los factores ecológicos y geográficos propios de los pisos altoandinos, donde la plasticidad fenotípi-ca actúa como mecanismo de adaptación a gradien-tes ambientales contrastantes (Clark et al., 2007).
El hábito de crecimiento trepador predominó en el 58,8% de los ecotipos evaluados, seguido del semierecto (35,3%) y rastrero (5,9%); el hábito de producción concentrado en los tres tercios de la rama fue el más frecuente (58,8%), mientras que la hoja trifoliada fue la forma predominante (58,8%), el margen foliar aserrado correspondió al 76,5% de los ecotipos y la base subcordada de los folíolos al 76,5%. La alta frecuencia de la hoja trifoliada y el margen aserrado en los ecotipos cultivados de R. glaucus coincide con las descripciones morfoló-gicas previas para esta especie en los Andes ecuatorianos (Romoleroux, 1996; López et al., 2022), mientras que la diversidad en el hábito de crecimiento y producción refleja la variabilidad intraespecífica acumulada en los cultivares locales a lo largo de décadas de selección empírica por parte de los agricultores.
Tabla 4
Medias de resumen de las características morfológicas de los ecotipos de mora (Rubus spp.)
|
Variables |
Código |
Descriptor |
Porcentaje |
Media |
Desviación estándar |
Varianza |
CV |
|
|
Morfología general |
||||||||
|
Hábito de crecimiento |
HC |
Trepadores |
58,8 |
2,29 |
0,58 |
0,34 |
25,62% |
|
|
Rastreros |
5,90 |
|||||||
|
Semierecto |
35,3 |
|||||||
|
Hábito de producción |
HP |
1/3 de la rama |
23,5 |
2,35 |
0,86 |
0,74 |
36,63%* |
|
|
2/3 de la rama |
17,6 |
|||||||
|
3/3 de la rama |
58,8 |
|||||||
|
Tallo |
||||||||
|
Cerosidad del tallo |
CER |
Ausente |
41,2 |
1,59 |
0,51 |
0,26 |
31,94%* |
|
|
Presente |
58,8 |
|||||||
|
Forma de los acúleos en el tallo |
FOR_E |
Ausente |
11,8 |
2,76 |
0,66 |
0,44 |
24,02% |
|
|
Curva |
88,2 |
|||||||
|
Hojas y foliolos |
||||||||
|
Vellosidades en las hojas |
VELL |
Ausente |
58,8 |
1,41 |
0,51 |
0,26 |
35,93%* |
|
|
Presente |
41,2 |
|||||||
|
Forma de los acúleos en las hojas |
F_ESP |
Ausente |
11,8 |
2,53 |
0,72 |
0,51 |
28,36%* |
|
|
Recta |
23,5 |
|||||||
|
Curva |
64,7 |
|||||||
|
Forma de la hoja |
F_HOJ |
Trifoliada |
58,8 |
1,71 |
0,99 |
0,97 |
57,75%* |
|
|
Palmeada |
17,6 |
|||||||
|
Trifoliada y Palmeada |
17,6 |
|||||||
|
Imparipinnada |
5,9 |
|||||||
|
Forma del margen de la hoja |
F_MAR |
Aserrado |
76,5 |
1,24 |
0,44 |
0,19 |
35,40%* |
|
|
Biaserrado |
23,5 |
|||||||
|
Forma de base de los foliolos |
|
Obtusa |
17,6 |
1,88 |
0,49 |
0,24 |
25,77%* |
|
|
F_BAS |
Subcordada |
76,5 |
||||||
|
|
Inequilátera |
5,9 |
||||||
|
Forma ápice de la hoja |
F_AP |
Acuminada |
64,7 |
1,35 |
0,49 |
0,24 |
36,41%* |
|
|
Emarginado |
35,3 |
|||||||
|
Forma del foliolo |
F_FOL |
Oblongo-elíptico |
35,3 |
1,65 |
0,49 |
0,24 |
29,91%* |
|
|
Ovalado-lanceolado |
64,7 |
|||||||
|
Puntos de color verde-oscuro en el envés |
F_VER |
Ausente |
100 |
1 |
0 |
0 |
0% |
|
|
Presente |
0 |
|||||||
|
Color del envés de la hoja |
C_EN |
Verde |
41,2 |
1,59 |
0,51 |
0,26 |
31,94%* |
|
|
Blanco |
58,8 |
|||||||
|
Flor |
||||||||
|
Color de la corola |
C_COR |
Blanco |
64,7 |
1,35 |
0,49 |
0,24 |
36,41%* |
|
|
Lila |
35,3 |
|||||||
|
Forma del pétalo |
F_PET |
Redondeado |
41,2 |
1,59 |
0,51 |
0,26 |
32,08%* |
|
|
Lanceolado |
58,8 |
|||||||
|
Color del cáliz |
C_CAL |
Verde |
100 |
1 |
0 |
0 |
0% |
|
|
Otro |
0 |
|||||||
|
Fruto |
||||||||
|
Color del fruto |
COL_FRU |
Morado oscuro |
94,1 |
1,06 |
0,24 |
0,06 |
22,91% |
|
|
Rojo |
5,9 |
|||||||
|
Forma del fruto maduro |
L_D |
Redondeada |
64,7 |
1,35 |
0,49 |
0,24 |
36,40%* |
|
|
Cónica |
35,3 |
|||||||
Nota. D.E. = desviación estándar; CV = coeficiente de variación; * CV > 25%.
3.2. Análisis multivariado de la caracterización morfológica de ecotipos de Rubus spp.
La selección de los componentes se realizó consi-derando los factores cuyos valores característicos expliquen el 70% o más de la varianza total (Cliff, 1987) y los componentes cuyo valor propio sea mayor o igual a uno (Kaiser, 1960). En este análisis se identificaron dos dimensiones principales que, en conjunto, explican el 82,61% de la variabilidad observada (Tabla 5).
La Tabla 5 presenta los valores propios, la inercia y el porcentaje de varianza explicada por cada dimensión del ACM. La Dimensión 1 (D1) concentró el 46,91% de la varianza con un Alfa de Cronbach de 0,925, lo que muestra fuerte consistencia interna del modelo; la Dimensión 2 (D2) aportó el 35,71% adicional (α = 0,880). Los descriptores con mayor medida discriminante en D1 fueron: hábito de producción (0,987), forma del pétalo (0,854), forma de los acúleos en las hojas (0,817), forma de la base de los folíolos (0,793) y forma del margen foliar (0,786) y forma del fruto maduro (0,786), presentan mayor interdepen-dencia y constituyen el eje principal de diferenciación fenotípica entre los ecotipos evaluados (Tabla 6).
Tabla 5
Resumen del modelo de las características morfológicas de los ecotipos de mora
|
Dimen- sión |
Alfa de Cronbach |
Varianza explicada |
||
|
Total |
Inercia |
% de varianza |
||
|
D1 |
0,925 |
7,505 |
0,469 |
46,908 |
|
D2 |
0,880 |
5,713 |
0,357 |
35,706 |
|
Total |
|
13,218 |
0,826 |
|
|
Media |
0,905 |
6,609 |
0,413 |
41,307 |
Este comportamiento es esperable, ya que en el análisis factorial, a mayor dependencia entre variables, mayor es la inercia observada (Ortega et al., 2021).
Desde el punto de vista biológico, este patrón sugiere que los caracteres vegetativos y reproduc-tivos agrupados en D1 no varían de forma inde-pendiente, sino que responden a una arquitectura morfológica integrada, probablemente asociada a la adaptación ecológica de cada especie a su nicho altitudinal y lumínico en los Andes ecuatorianos. Esta variación morfológica es característica del género Rubus, donde la presencia o ausencia de acúleos, el tipo de hoja y el hábito de crecimiento están frecuentemente ligados a estrategias de com-petencia y dispersión en ecosistemas perturbados (Alice & Campbell, 1999; Potter et al., 2007).
Los descriptores que mayor peso aportaron a D1, en particular la forma de los acúleos en las hojas y el margen foliar, coinciden con los identificados por Espinosa et al. (2016) y Zamorano et al. (2007) como los de mayor poder discriminante en colecciones andinas de mora en Colombia, lo que confirma su utilidad taxonómica transregional.
La Dimensión 2, por su parte, integró rasgos de naturaleza ecofisiológica: cerosidad del tallo (0,875), vellosidades en las hojas (0,875), forma de la hoja (0,978) y color del envés de la hoja (0,875), que reflejan diferencias en las estrategias adapta-tivas de las especies evaluadas a los gradientes de humedad y luminosidad característicos de los pisos andinos (Tabla 6).
Las tres localidades muestreadas abarcan un rango altitudinal de 2037 a 2620 msnm y presentan condiciones microclimáticas contras-tantes, con precipitaciones medias anuales que oscilan entre 750 y 1750 mm (Tabla 1); este gradiente altitudinal y de humedad probablemente contribuye a la plasticidad fenotípica observada en los descriptores ecofisiológicos que estructuran D2, en particular la cerosidad del tallo y la vellosidad foliar, mecanismos frecuentemente asociados a la regulación hídrica y a la protección frente a la radiación solar en ambientes de montaña (Clark et al., 2007). Esta influencia altitudinal ha sido documentada específicamente para R. glaucus en la misma provincia: Sánchez-Morales et al. (2018), al evaluar tres pisos altitudinales en la provincia Bolívar (bajo <2100, medio 2100–2500 y alto 2500–3000 msnm), incluyendo el sector Guantug Cruz aquí también muestreado, encontraron diferencias estadísticamente significativas (prueba de Tukey, p < 0,05) entre pisos altitudinales en el número de tallos terciarios, el número de hojas, los sólidos solubles, la acidez titulable y los días transcurridos de floración a cosecha, confirmando que el piso altitudinal modula de forma medible tanto rasgos vegetativos como reproductivos en ecotipos de mora de esta misma región.
Entre los descriptores florales, el color de la corola mostró un poder discriminante bajo en ambas dimensiones (D1 = 0,138; D2 = 0,003; Tabla 6). Este resultado es coherente con la conservación de los caracteres florales dentro de las especies y de los cultivares de R. glaucus, todos de corola blanca (sección 3.3.2), y con el hecho de que la medida discriminante del ACM cuantifica la asociación de cada descriptor con los ejes principales y no su variabilidad marginal: el color de la corola alcanzó un CV elevado (36,41%; Tabla 4) por la proporción entre sus estados (64,7:35,3), pero no se asoció con D1 ni con D2. La forma del pétalo, en cambio, no mostró el mismo patrón: presentó un poder discriminante alto en D1 (0,854), uno de los más elevados entre los 16 descriptores activos, superado solo por hábito de producción (0,987), aunque bajo en D2 (0,067), lo que indica que este carácter floral sí aporta de manera relevante al eje principal de diferenciación fenotípica. Este com-portamiento diferencial no es exclusivo de los descriptores reproductivos: entre los vegetativos se observa el mismo rango, con valores de D1 tan bajos como los de cerosidad del tallo, vellosidades en las hojas y color del envés (0,005 en los tres casos; Tabla 6), incluso inferiores al de la corola. En conjunto, estos resultados evidencian que, en Rubus, el poder discriminante de un carácter no depende del órgano al que pertenece (vegetativo o reproductivo), sino de la variabilidad categórica que efectivamente expresa dentro de la población muestreada.
Tabla 6
Medidas discriminantes de las variables cualitativas de la caracterización morfológica de ecotipos de mora (Rubus spp.)
|
Variable |
Código |
Dimensión |
Media |
|
|
1 |
2 |
|||
|
Hábito de crecimiento |
HC |
0,628 |
0,419 |
0,524 |
|
Hábito de producción |
HP |
0,987 |
0,560 |
0,774 |
|
Cerosidad del tallo |
CER |
0,005 |
0,440 |
|
|
Forma de los acúleos en el tallo |
FOR_E |
0,124 |
0,158 |
0,141 |
|
VELL |
0,005 |
0,875 |
0,440 |
|
|
Forma de los acúleos en las hojas |
F_ESP |
0,817 |
0,355 |
0,586 |
|
F_HOJ |
0,221 |
0,600 |
||
|
Forma del margen de la hoja |
F_MAR |
0,786 |
0,126 |
0,456 |
|
Forma de base de los Foliolos |
F_BAS |
0,793 |
0,164 |
0,478 |
|
Forma ápice de la hoja |
F_AP |
0,625 |
0,067 |
0,346 |
|
Forma del foliolo |
F_FOL |
0,625 |
0,067 |
0,346 |
|
Color del envés de la hoja |
C_EN |
0,005 |
0,875 |
0,440 |
|
Color de la corola |
C_COR |
0,138 |
0,003 |
0,070 |
|
Forma del pétalo |
F_PET |
0,854 |
0,067 |
0,460 |
|
Color del fruto |
COL_FRU |
0,107 |
0,000 |
0,053 |
|
Forma del fruto maduro |
L_D |
0,786 |
0,126 |
0,456 |
|
Total, activo |
7,505 |
5,713 |
6,609 |
|
|
% de varianza |
46,908 |
35,706 |
41,307 |
|
La consistencia interna del modelo calculado mediante el coeficiente alfa de Cronbach, basado en el promedio de las correlaciones entre ítems, cuyo valor máximo es 1, señala valores cercanos a 1 indican alta confiabilidad del análisis (Rivera et al., 2023).
El gráfico de puntos por categorías corresponde al mapa de correspondencias, en el cual se repre-sentan simultáneamente los ecotipos y las categorías de las variables cualitativas evaluadas. En el panel (a) de la Figura 1 se ubican los ecotipos, distribuidos en el espacio bidimensional según sus distancias relativas. En el primer cuadrante, caracterizado por su cercanía al origen y su alineación a lo largo del eje principal, se agrupan los ecotipos mora colombiana sin acúleos, mora colombiana con acúleos y mora de Castilla. El segundo cuadrante está representado por el ecotipo mora blanca y mora fresa, mientras que en el tercer cuadrante se localiza el ecotipo mora criolla. Finalmente, el cuarto cuadrante corres-ponde al ecotipos mora zarza.
En el panel (b) de la Figura 1 se proyectan las cate-gorías de las variables cualitativas, representadas en el mismo espacio bidimensional.
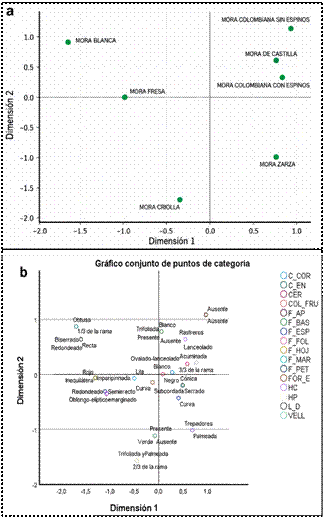
Figura 1. Mapa de correspondencias múltiples: (a) ecotipos y (b) categorías de las variables cualitativas en las dimensiones 1 (46,91%) y 2 (35,71%). C_COR: Color de la corola, C_EN: Color del envés de la hoja, CER: Cerosidad del tallo, COL_FRU: Color del fruto, F_AP: Forma ápice de la hoja, F_BAS: Forma de base de los foliolos, F_ESP: Forma de los acúleos en las hojas, F_FOL: Forma del foliolo, F_HOJ: Forma de la hoja, F_MAR: Forma del margen de la hoja, F_PET: Forma del pétalo, FOR_E: Forma de los acúleos en el tallo, HC: Hábito de crecimiento, HP: Hábito de producción, L_D: Forma del fruto maduro, VELL: Vellosidades en las hojas.
Las categorías con valores negativos se asocian con características tales como: forma del pétalo redon-deada, hoja imparipinnada, ápice emarginado, forma oblongo-elíptica del foliolo, hábito de crecimiento semierguido, color verde del envés, presencia de vellosidades, hojas trifoliadas y palmeadas, base inequilátera de los foliolos, hábito de producción en dos tercios de la rama, acúleos curvos y corola de color lila. En contraste, las categorías con valores positivos corresponden a los estados alternativos de estas variables.
3.3. Análisis de conglomerados o clúster para los ecotipos de Rubus spp.
Los ecotipos evaluados pertenecen a tres subgéne-ros del género Rubus L. reconocidos para Ecuador (Romoleroux, 1996; Espinel & Romoleroux, 2021): el subgénero Rubus (nativo andino), representado por R. glaucus Benth., R. floribundus Kunth y R. adenotrichos Schltdl.; el subgénero Orobatus Focke (endémico andino), con especies propias de ecosistemas de páramo y bosque montano; y el subgénero Idaeobatus (Focke) Focke, representado por R. niveus Thunb. y R. rosifolius Sm., ambas espe-cies introducidas y naturalizadas en el país. Esta diversidad subgenérica explica en parte la ampli-tud de la variabilidad morfológica observada en el análisis de correspondencias múltiples, dado que las diferencias morfológicas entre subgéneros son considerablemente mayores que las existentes entre especies de un mismo subgénero, como ha sido documentado en estudios filogenéticos del género (Alice & Campbell, 1999; Potter et al., 2007).
La matriz de distancia euclídea (Tabla 7) constituyó la base numérica del agrupamiento jerárquico. Los ecotipos con mayor similitud morfológica fue el conformado por el ecotipo 3 (R. glaucus, mora de Castilla) y el ecotipo 5 (R. glaucus, mora colombiana con acúleos), lo que muestra identidad morfológica con relación a los descriptores cualitativos analizados. Esta identidad es coherente con la clasificación de ambos materiales bajo la misma especie y refleja la estrecha base genética de los cultivares comerciales de mora de Castilla en Ecuador, documentada previamente mediante marcadores microsatélites por Simbaña (2020). En el extremo opuesto, la mayor disimilitud se registró entre el ecotipo 6 (mora colombiana sin acúleos) y el ecotipo 7 (R. ulmifolius), con una distancia de 26,000, lo que expresa la amplitud fenotípica que separa a los cultivares comerciales de R. glaucus de las especies silvestres de hábito rastrero-sarmentoso. El historial de conglomeración (Tabla 8) muestra que el proceso de fusión siguió un patrón escalonado con dos saltos de distancia destacados. En las primeras cuatro etapas, los coeficientes de fusión crecieron moderadamente: de 0,000 (etapa 1) a 3,500 (etapa 2), 8,833 (etapa 3) y 17,333 (etapa 4). A partir de la etapa 5, la incorporación del ecotipo 1 (R. rosifolius) al grupo formado por los ecotipos 2, 4 y 7 mantuvo un coeficiente similar (≈ 17,333), lo que indica que este taxón, aunque morfológicamente singular, guarda mayor afinidad con las especies silvestres que con los cultivares de R. glaucus.
Tabla 7
Matriz de distancias euclídeas al cuadrado entre los siete taxones de Rubus spp. evaluados
|
Ecotipo |
Distancia euclídea al cuadrado |
||||||
|
1: 1 |
2: 2 |
3: 3 |
4: 4 |
5: 5 |
6: 6 |
7: 7 |
|
|
1: R. rosifolius |
0,000 |
13,000 |
16,000 |
16,000 |
16,000 |
20,000 |
24,000 |
|
2: R. floribundus |
13,000 |
0,000 |
15,000 |
7,000 |
15,000 |
23,000 |
13,000 |
|
3: R. glaucus (Castilla) |
16,000 |
15,000 |
0,000 |
6,000 |
0,000 |
8,000 |
22,000 |
|
4: R. niveus |
16,000 |
7,000 |
6,000 |
0,000 |
6,000 |
14,000 |
16,000 |
|
5: R. glaucus (col. c/a) |
16,000 |
15,000 |
0,000 |
6,000 |
0,000 |
8,000 |
22,000 |
|
6: R. glaucus (col. s/a) |
20,000 |
23,000 |
8,000 |
14,000 |
8,000 |
0,000 |
26,000 |
|
7: R. ulmifolius |
24,000 |
13,000 |
22,000 |
16,000 |
22,000 |
26,000 |
0,000 |
Nota: c/a = con acúleos; s/a = sin acúleos Sombreado naranja: distancia cero (identidad morfológica); sombreado verde: distancias ≤ 8,000 (alta similitud). Leyenda de ecotipos: 1 = R. rosifolius, 2 = R. floribundus, 3 = R. glaucus mora de Castilla, 4 = R. niveus, 5 = R. glaucus mora colombiana con acúleos, 6 = R. glaucus mora colombiana sin acúleos, 7 = R. ulmifolius.
Tabla 8
Historial de conglomeración. Método de Ward con distancia euclídea
|
Etapa |
Clúster combinado |
Coeficientes |
Primera aparición del clúster de etapa |
Etapa siguiente |
||
|
Clúster 1 |
Clúster 2 |
Clúster 1 |
Clúster 2 |
|||
|
1 |
3 |
5 |
0,000 |
0 |
0 |
3 |
|
2 |
2 |
4 |
3,500 |
0 |
0 |
4 |
|
3 |
3 |
6 |
8,833 |
1 |
0 |
6 |
|
4 |
2 |
7 |
17,333 |
2 |
0 |
5 |
|
5 |
1 |
2 |
27,583 |
0 |
4 |
6 |
|
6 |
1 |
3 |
43,714 |
5 |
3 |
0 |
3.3.1. Análisis de conglomerados
El dendrograma generado por el método de Ward (Figura 2) permitió distinguir tres conglomerados morfológicos diferenciados (Tabla 9). Para validar la calidad del agrupamiento, se calculó el coeficiente de correlación cofenética (CCC) entre la matriz de distancias euclídeas original (Tabla 7) y la matriz de distancias cofenéticas derivada del historial de conglomeración (Tabla 8), obtenién-dose un valor de r = 0,75, valor aceptable (0,70–0,85) aunque inferior al 0,85 convencionalmente considerado indicativo de un buen ajuste entre el dendrograma y la matriz de distancias original (Sokal & Rohlf, 1962), este resultado señala una representación moderada de las relaciones fenotípicas originales. La distorsión se concentra en las últimas fusiones (etapas 4 a 6; Tabla 8), donde el salto de distancia entre las etapas 4 (17,333) y 5 (27,583) es marcado, y es esperable dado el reducido número de taxones analizados. Por ello, la interpretación de los conglomerados se apoyó también en el ACM (82,61% de la varianza explicada en dos dimensiones), cuyo mapa de correspondencias (Figura 1) reproduce la separación de los cultivares de R. glaucus respecto del resto de los taxones. El dendrograma muestra que los ecotipos 3, 5 y 6 forman un grupo bien definido, ya que se agrupan a distancias bajas (menores a 8) y permanecen separados del resto hasta casi el final del proceso de fusión.
Por otro lado, en el grupo inferior se distinguen dos subgrupos: uno conformado por los ecotipos 2 (R. floribundus) y 4 (R. niveus), que se unen a una distancia cercana a 5, lo que indica alta similitud; y otro integrado por los ecotipos 7 (R. ulmifolius) y 1 (R. rosifolius), que se agrupan a una distancia mayor (≈13), reflejando menor similitud. Finalmente, estos dos subgrupos se fusionan entre sí alrededor de la distancia 15, justo en el punto de corte, lo que permite considerarlos como un solo conglomerado.
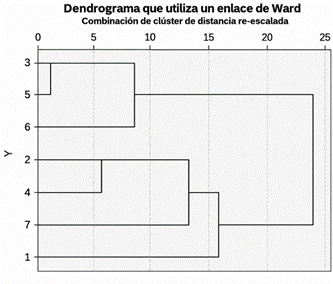
Figura 2. Dendrograma del análisis de conglomerados jerárquico de las variables cualitativas, con base en la distancia Euclídea.
Tabla 9
Conformación de los tres conglomerados morfológicos de Rubus spp.
|
Cong. |
Ecotipos |
Especie(s) |
Resumen de rasgos morfológicos diagnósticos compartidos |
|
C1 |
Mora de Castilla, mora colombiana con acúleos, mora colombiana sin acúleos |
R. glaucus Benth. (cultivados) |
Hábito trepador; hoja trifoliada, margen biaserrado; cerosidad presente; envés blanquecino; fruto morado oscuro redondeado. Se diferencian internamente solo por presencia/ausencia de acúleos. |
|
C2 |
Mora criolla, mora blanca |
R. floribundus Kunth, R. niveus Thunb. |
Ausencia de cerosidad; vellosidades presentes; acúleos rectos y curvos; margen aserrado; envés verde |
|
C3 |
Mora zarza, mora fresa |
R. ulmifolius Schott, R. rosifolius Sm. |
Hoja imparipinnada en R. rosifolius; frutos cónicos/rojos. |
Nota: C1 = Conglomerado 1; C2 = Conglomerado 2; C3 = Conglomerado 3. c/a = con acúleos; s/a = sin acúleos.
3.3.2. Conglomerado 1: Cultivares de R. glaucus
El Conglomerado 1 integró los tres ecotipos cultivados de R. glaucus Benth.: mora de Castilla (ecotipo 3), mora colombiana con acúleos (ecotipo 5) y mora colombiana sin acúleos (ecotipo 6). La incorporación de estos materiales al mismo conglomerado siguió un proceso secuencial: en la etapa 1, los ecotipos 3 y 5 se fusionaron con distancia euclídea de 0,000, evidenciando identidad morfológica en los descriptores evaluados; en la etapa 3, el ecotipo 6 se incorporó al grupo a una distancia de 8,833, siendo el único descriptor diferencial la ausencia de acúleos en tallo y hoja. El perfil morfológico compartido por los tres ecotipos incluye: hábito de crecimiento trepador, producción distribuida en los dos y tres tercios distales de la rama, cerosidad del tallo presente, hojas trifoliadas con margen biaserrado, base subcordada de los folíolos, ápice acuminado, forma del folíolo ovalado-lanceolada, envés blanquecino, corola blanca, pétalo lanceolado y fruto morado oscuro de forma redondeada. Estas características coinciden plenamente con las descripciones de referencia para la especie en los Andes ecuatorianos (Romoleroux, 1996; López et al., 2022). La separación interna entre los ecotipos con y sin acúleos, pese a pertenecer al mismo conglomerado, replica la bipartición documentada por Viteri et al. (2018) en colecciones ecuatorianas de mora de Castilla, confirmando que la presencia o ausencia de acúleos constituye el descriptor morfológico de mayor valor diagnóstico para la diferenciación de cultivares comerciales de R. glaucus. La baja variabilidad intraconglomerado es coherente con la estrecha base genética de los cultivares comerciales de esta especie en Ecuador (Iza et al., 2020; Simbaña, 2020).
3.3.3. Conglomerado 2: R. floribundus y R. niveus
El Conglomerado 2 agrupó los ecotipos 2 (R. floribundus Kunth, mora criolla) y 4 (R. niveus Thunb., mora blanca), cuya fusión a una distancia euclídea de 3,500 en la etapa 2 los posiciona como el segundo par más similar en el conjunto evaluado, después de los cultivares de R. glaucus. Ambos comparten un perfil morfológico de carácter silvestre caracterizado por: ausencia de cerosidad en el tallo, presencia abundante de vellosidades en tallos y hojas, acúleos tanto rectos como curvos, margen foliar aserrado, envés foliar de color verde y frutos de forma cónica. Estas características coinciden con las descripciones de Espinosa et al. (2016) para material silvestre del género Rubus en los Andes colombianos, quienes identificaron la ausencia de cerosidad y la presencia marcada de indumento como descriptores diagnósticos de las especies silvestres frente a los cultivares comerciales. La agrupación de R. niveus junto a R. floribundus merece una precisión taxonómica: aunque R. niveus pertenece al subgénero Idaeobatus y es originaria del sur y sudeste de Asia (Romoleroux, 1996), su perfil fenotípico en los descriptores cualitativos evaluados la aproxima a las especies del subgénero Rubus (nativo andino) presentes en este estudio. Esta convergencia fenotípica entre subgéneros taxonómicamente distantes es atribuible a la plasticidad morfológica asociada a la adaptación a los mismos gradientes ambientales de los pisos altoandinos ecuatorianos, donde ambas especies coexisten en bordes de bosque y áreas perturbadas (Clark et al., 2007; Espinosa et al., 2016).
3.3.4. Conglomerado 3: R. ulmifolius y R. rosifolius
El Conglomerado 3 agrupó los ecotipos 7 (R. ulmifolius Schott, mora zarza) y 1 (R. rosifolius Sm., mora fresa), fusionados a una distancia euclídea aproximada de 17,333 en la etapa 4 del historial de conglomeración. Este conglomerado se ubica en la porción inferior del dendrograma y se caracteriza por agrupar los taxones con mayor distancia morfológica respecto a los cultivares de R. glaucus. R. ulmifolius comparte con R. rosifolius el hábito silvestre, la presencia de vellosidades en hojas y la ausencia de cerosidad en el tallo; sin embargo, se diferencia de los ecotipos del Conglomerado 2 principalmente por su mayor distancia euclídea respecto a los cultivares de mora. R. rosifolius Sm. (Mora fresa) aporta al conglomerado su rasgo morfológico más singular: la forma imparipinnada de la hoja, con cinco a siete folíolos, carácter diagnóstico que lo distingue de la totalidad de los ecotipos evaluados. Adicionalmente, presenta frutos de color rojo intenso en madurez, a diferencia del morado oscuro predominante en los demás ecotipos, y pétalos de forma redondeada. Desde el punto de vista taxonómico, R. rosifolius pertenece al subgénero Idaeobatus, al igual que las frambuesas comerciales (Romoleroux, 1996). Su inclusión en el Conglomerado 3 indica que, en el conjunto de descriptores cualitativos evaluados, este taxón guarda mayor afinidad fenotípica con las especies silvestres de porte sarmentoso que con los cultivares comerciales de R. glaucus, coherente con su condición de especie naturalizada que comparte el mismo hábitat perturbado de borde de bosque (Espinel & Romoleroux, 2020). Cabe destacar que la fusión de este conglomerado con el Conglo-merado 2, ocurre en el límite del corte establecido, lo que indica que los Conglomerados 2 y 3 comparten mayor afinidad entre sí que con el Conglomerado 1, en correspondencia con su condición silvestre común frente a los materiales cultivados.
La estructura de tres conglomerados obtenida por el método de Ward es biológicamente coherente con la taxonomía subgenérica del material evaluado y con la distinción entre materiales cultivados y silvestres. El Conglomerado 1, conformado exclusivamente por R. glaucus, refleja la baja variabilidad fenotípica intraespecífica de los cultivares comerciales de mora de Castilla en Ecuador, resultado coherente con los datos moleculares de Simbaña (2020), quien encontró que los materiales cultivados presentan heterocigosidad significativamente menor que los silvestres. Los conglomerados 2 y 3, al reunir exclusivamente especies silvestres y naturalizadas, evidencian una mayor diversidad fenotípica intergrupo, expresada en la amplitud de distancias euclídeas que oscilan entre 7,000 (R. floribundus – R. niveus) y 26,000 (R. ulmifolius – mora colombiana sin acúleos). Esta variabilidad diferencial entre materiales cultivados y silvestres es característica del género Rubus, cuya amplia diversidad fenotípica responde tanto a la complejidad genética del grupo marcada por altos niveles de poliploidía, hibridación y apomixis (Huang et al., 2023), como a la influencia de los factores ecológicos y geográficos propios de los pisos altoandinos donde la plasticidad fenotípica actúa como mecanismo de adaptación (Clark et al., 2007). Los resultados son consistentes con los reportados por Zamorano et al. (2007) en Colombia, quienes también identificaron la separación entre materiales cultivados y silvestres como el principal eje de diferenciación morfológica en colecciones andinas del género. Esta coincidencia se extiende más allá de la región andina: en un estudio de variabilidad morfológica de zarzamoras silvestres del género Rubus en México, empleando igualmente ACM sobre descriptores cualitativos, Rodríguez-Bautista et al. (2019) también reportaron que la longitud de la planta, la forma de las espinas del tallo y el margen y base de la hoja concentraron la mayor variabilidad morfológica entre especies silvestres, coincidiendo con varios de los descriptores vegetativos de mayor peso discriminante en D1 del presente estudio (forma de los acúleos, forma de la base de los folíolos, margen foliar). Esta conver-gencia entre colecciones ecuatorianas, colombia-nas y mexicanas sugiere que el eje cultivado silves-tre y los descriptores foliares y del tallo constituyen ejes de diferenciación morfológica recurrentes en el género Rubus a lo largo de su distribución americana, independientemente de la región.
Como limitaciones del estudio deben reconocerse el reducido número de taxones analizados (n = 7, tras agrupar los 16 registros de campo), el ajuste moderado del dendrograma (CCC = 0,75), la evaluación exclusiva de descriptores cualitativos y la no incorporación del índice de Jaccard como medida complementaria de similitud. Estos aspectos deberán abordarse en estudios poste-riores mediante un muestreo ampliado de accesiones, la evaluación de descriptores cuanti-tativos (por ejemplo, peso del fruto y longitud de entrenudos) en un ambiente común y la comparación de matrices de similitud (Jaccard o coincidencia simple frente a distancia euclídea) mediante la prueba de Mantel, lo que permitiría además contrastar la influencia de la altitud y del microclima sobre la plasticidad fenotípica discutida previamente.
CONCLUSIONES
Los descriptores cualitativos evaluados mediante el Análisis de Correspondencias Múltiples (ACM) permitieron explicar el 82,61% de la variabilidad morfológica total de los ecotipos Rubus spp. en el cantón Guaranda en dos dimensiones. El hábito de producción, la forma de los acúleos en las hojas, el margen foliar y la forma del fruto maduro constituyeron los descriptores de mayor poder discriminante.
El análisis de conglomerados delimitó tres grupos morfológicamente diferenciados: los cultivares de R. glaucus Benth. (C1), las especies R. floribundus Kunth y R. niveus Thunb. (C2), y el grupo integrado por R. ulmifolius Schott y R. rosifolius Sm. (C3). La baja variabilidad intraespecífica de R. glaucus evidenciada entre sus cultivares es coherente con la estrecha base genética de los materiales comerciales. La mayor diversidad fenotípica se concentró en los materiales no cultivados tanto silvestres nativos como naturalizados confirmando su potencial como fuente de variabilidad genética para programas de mejoramiento.
Para futuras caracterizaciones de Rubus en los Andes ecuatorianos, se recomienda priorizar un subconjunto reducido de descriptores morfoló-gicos de alto poder discriminante y fácil evaluación visual en campo: hábito de producción, forma de los acúleos en las hojas, forma de la base de los folíolos, forma del margen foliar, forma del pétalo y forma del fruto maduro, todos con medidas discriminantes y de rápida observación sin necesidad de instrumentos especializados. La forma del pétalo y la del fruto se registran durante la floración y la fructificación, respectivamente. Como complemento, la forma de la hoja, la cerosidad del tallo, las vellosidades foliares y el color del envés diferencian a los cultivares de R. glaucus de los materiales silvestres y pueden incorporarse a una ficha de campo abreviada.
AGRADECIMIENTOS
Agradecemos a Dios por la salud y guía brindada durante la realización de este trabajo. De igual manera, extendemos nuestro a los miembros y al presidente de las comunidades, como también una gratitud y reconoci-miento al grupo de investigación por sus contribuciones científicas al desarrollo de este estudio, el cual se presenta como una base de consulta para el avance de la investigación agrícola en el país.
REFERENCIAS BIBLIOGRÁFICAS
Abdi, H., & Valentin, D. (2007). Multiple correspondence analysis. En N. J. Salkind (Ed.), Encyclopedia of Measurement and Statistics (pp. 651–657). Sage.
Alice, L. A., & Campbell, C. S. (1999). Phylogeny of Rubus (Rosaceae) based on nuclear ribosomal DNA internal transcribed spacer region sequences. American Journal of Botany, 86(1), 81–97. https://doi.org/10.2307/2656954
Carrillo, E., Aller, A., Cruz, S., Giampieri, J., & Álvarez, J. (2015). Andean berries from Ecuador: A review on botany, agronomy, chemistry and health potential. Journal of Berry Research, 5(1), 49–69. https://doi.org/10.3233/JBR-140092
Castro, J., & Cerdas, M. (2005). Mora (Rubus sp.): Cultivo y manejo poscosecha. Imprenta Nacional.
Cerdas, M., & Montero, M. (1992). Diagnóstico preliminar del manejo poscosecha de la mora (Rubus sp.) en Santa María de Dota y El Guarco. Agronomía Costarricense, 16(2), 257–263.
Clark, J. R., Stafne, E. T., Hall, H. K., & Finn, C. E. (2007). Blackberry breeding and genetics. Plant Breeding Reviews, 29, 17–146.
Cliff, N. (1987). Analyzing multivariate data. Harcourt Brace Jovanovich.
Chen, J.-N., Feng, C.-Z., Zhao, D.-X., Deng, L.-L., Chen, Y.-Z., Jia, L., Ji, H.-X., Yang, M.-X., Li, J., Huang, T.-R., Ma, L.-Q., & Yang, M.-F. (2026). Comparative genomics on chloroplasts of Chinese Rubus: Genetic structure and phylogenetic relationships with other species of Rosaceae. Frontiers in Plant Science, 17, 1765373. https://doi.org/10.3389/fpls.2026.1765373
Espinel Ortiz, D. A., Romoleroux, K., Böhnert, T., & Weigend, M. (2024). Annotated checklist of Rubus L. (Rosaceae) from South America. PhytoKeys, 247, 75–110. https://doi.org/10.3897/phytokeys.247.127527
Espinel-Ortiz, D. A., & Romoleroux, K. (2020). Rubus rosifolius Smith: a new record of an alien species in the flora of Ecuador. BioInvasions Records, 9(4), 712–722. https://doi.org/10.3391/bir.2020.9.4.05
Espinel-Ortiz, D. A., & Romoleroux, K. (2021). Two new species of Rubus L. (Rosaceae) from the western Andes of Ecuador. PhytoKeys, 187, 141–159. https://doi.org/10.3897/phytokeys.187.76963
Espinosa, N., Ligarreto, G., Barrero, S., & Medina, I. (2016). Variabilidad morfológica de variedades nativas de mora (Rubus spp.) en los Andes de Colombia. Revista Colombiana de Ciencias Hortícolas, 10(2), 211–221. https://doi.org/10.17584/rcch.2016v10i2.5746
FAOSTAT. (2023). Crop production data: Raspberries. https://www.fao.org/faostat/en/#data/QCL
Finn, C. (1999). Temperate berry crops. In J. Janick (Ed.), Perspectives on new crops and new uses (pp. 324–333). ASHS Press.
Finn, C., & Hancock, J. (2008). Raspberries. In J. F. Hancock (Ed.), Temperate fruit crop breeding: Germplasm to genomics (pp. 359–392). Springer.
Gao, X., Xiong, X., Boufford, D. E., Gao, Y., Xu, B., & Zhang, C. (2023). Phylogeny of the diploid species of Rubus (Rosaceae). Genes, 14(6), 1152. https://doi.org/10.3390/genes14061152
Gobierno Autónomo Descentralizado de la Provincia de Bolívar. (2015). Plan de desarrollo y ordenamiento territorial de la provincia Bolívar 2015–2020.
Greenacre, M. (2017). Correspondence analysis in practice (3rd ed.). Chapman & Hall/CRC.
Guerrero, D. (2023). Nutrición del cultivo de mora (Rubus glaucus Benth), utilizando análisis de suelo. Medwave. https://www.medwave.cl/resumenescongreso/UTA2023/UTA360.html
Hey, J., Fitch, W. M., & Ayala, F. J. (2005). Systematics and the origin of species: An introduction. Proceedings of the National Academy of Sciences, 102(Suppl. 1), 6515–6519.
Huang, J., & Hu, J. (2009). Revision of Rubus (Rosaceae) in Taiwan. Taiwania, 54(4), 285–310.
Huang, T.-R., Chen, J.-H., Hummer, K. E., Alice, L. A., Wang, W.-H., He, Y., Yu, S.-X., Yang, M.-F., Chai, T.-Y., Zhu, X.-Y., Ma, L.-Q., & Wang, H. (2023). Phylogeny of Rubus (Rosaceae): Integrating molecular and morphological evidence into an infrageneric revision. TAXON, 72(2), 278–306. https://doi.org/10.1002/tax.12885
Iza, M., Viteri, P., Hinojosa, M., Martínez, A., Sotomayor, A., & Viera, W. (2020). Diferenciación morfológica, fenológica y pomológica de cultivares comerciales de mora (Rubus glaucus Benth.). Enfoque UTE, 11(2), 47–57.
Jaccard, P. (1901). Étude comparative de la distribution florale dans une portion des Alpes et du Jura. Bulletin de la Société Vaudoise des Sciences Naturelles, 37(142), 547–579.
Kaiser, H. F. (1960). The application of electronic computers to factor analysis. Educational and Psychological Measurement, 20, 141–151.
Kurtto, A., Weber, H. E., Lampinen, R., & Sennikov, A. N. (Eds.). (2010). Atlas florae Europaeae: Distribution of vascular plants in Europe (Vol. 15: Rosaceae—Rubus). The Committee for Mapping the Flora of Europe & Societas Biologica Fennica Vanamo.
López, S., González, A., & Yepes, M. (2022). Caracterización morfológica de materiales de mora (Rubus spp.) en municipios del departamento de Antioquia (Boletín técnico No. 44). AGROSAVIA. https://repository.agrosavia.co/handle/20.500.12324/18946
Marulanda, M., & Márquez, M. (2001). Caracterización de la diversidad genética de Rubus glaucus Benth. con marcadores moleculares (RAPD). Actualidades Biológicas, 23(74), 57–63.
Munguía, S., Orozco, R., & Argüello, J. (2005). Conservación y caracterización fenotípica del germoplasma de mora (Rubus spp.). In D. Flores & F. Argüello (Eds.), Cultivo de la mora: Innovaciones tecnológicas. Editorial Tecnológica de Costa Rica. https://www.catie.ac.cr/portal/publicaciones-catie/publicaciones-cientificas/publicaciones-tecnicas/1806-cultivo-de-la-mora-innovaciones-tecnologicas.html
Ortega, G., Lucio, A. V., Ganchozo, B. I., Piguave, C. C., Tumbaco, M. V., Cobeña, J. A., & Velásquez, R. V. (2021). Diseños experimentales: Teoría y práctica para experimentos agropecuarios. Editorial Mawil. https://mawil.us/wp-content/uploads/2022/09/disenos-experimentales-teoria-y-practicas-para-experimentos-agropecuarios.pdf
Potter, D., Eriksson, T., Evans, R. C., Oh, S., Smedmark, J. E. E., Morgan, D. R., Kerr, M., Robertson, K. R., Arsenault, M., & Campbell, C. S. (2007). Phylogeny and classification of Rosaceae. Plant Systematics and Evolution, 266, 5–43.
Rivera, O., Yangali, J., Rodríguez, J., & Ipanaqué, M. (2023). Manual de procesamiento estadístico para la investigación con SPSS. Universidad Privada Norbert Wiener. https://doi.org/10.37768/unw.vri.0011
Rodríguez-Bautista, G., Segura Ledesma, S. D., Cruz-Izquierdo, S., López-Medina, J., Gutiérrez-Espinosa, A., Cruz-Huerta, N., Carrillo-Salazar, J., & Valenzuela Núñez, L. M. (2019). Distribución y variabilidad morfológica de especies de zarzamoras en México (Rubus spp L.). Biotecnia, 21(2), 97–105.
Romoleroux, K. (1996). Rosaceae. In G. Harling & L. Andersson (Eds.), Flora del Ecuador (Vol. 56, pp. 1–169). University of Gothenburg.
Sánchez-Morales, J.A,, Villares-Jibaja, M.X.,, Niño-Ruiz, Z., & Ruilova, M.B. (2018). Efecto del piso altitudinal sobre la calidad de la mora (Rubus glaucus benth) en la región interandina del Ecuador. Idesia (Arica), 36(2), 209-215. https://dx.doi.org/10.4067/S0718-34292018005000702
Saltos, R., González, M., González, V., García, L., & Borja, E. (2020). Rendimiento y atributos de calidad de mora (Rubus glaucus Benth.) en cuatro zonas productoras de Bolívar. Revista de Investigación Talentos, 7(2), 33–45.
Simbaña, L. (2020). Caracterización morfológica de tres variedades de mora (Rubus glaucus Benth.) [Tesis de licenciatura, Universidad de Las Américas]. https://dspace.udla.edu.ec/handle/33000/11905
Simpson, M. G. (2019). Taxonomy and phylogenetic systematics. In M. G. Simpson (Ed.), Plant systematics (3rd ed., pp. 17–52). Academic Press. https://doi.org/10.1016/B978-0-12-812628-8.50002-X
Sochor, M., Trávníček, B., & Manning, J. (2018a). Biosystematic revision of Rubus species in the Cape Floristic Region. South African Journal of Botany, 118, 241–259.
Sochor, M., Hroneš, M., & Manning, J. C. (2022). Guía del género Rubus L. (Rosaceae) en Sudáfrica: Desentrañando un nudo gordiano taxonómico con la ayuda de datos de ploidía y reproducción. South African Journal of Botany, 147, 511–567. https://doi.org/10.1016/j.sajb.2022.01.044
Sokal, R. R., & Rohlf, F. J. (1962). The comparison of dendrograms by objective methods. Taxon, 11(2), 33–40.
Viteri, P., Martínez, A., & Proaño, D. (2018). Mora de Castilla. In INIAP (Ed.), Manejo del cultivo de mora de Castilla (Rubus glaucus Benth.) en el Ecuador (Serie científica No. 104, pp. 9–16). INIAP. https://repositorio.iniap.gob.ec/bitstream/41000/4066/1/iniapscCD104p105.pdf
Ward, J. H., Jr. (1963). Hierarchical grouping to optimize an objective function. Journal of the American Statistical Association, 58(301), 236–244. https://doi.org/10.1080/01621459.1963.10500845
Zamorano, A., Cruz Morillo, A., Morillo, Y., Vásquez, H., & Muñoz, J. E. (2007). Caracterización morfológica de mora en Colombia. Acta Agronómica, 56(2), 51–60.